都说鳄目是完美生物,为什么没有哺乳动物或两栖动物以鳄鱼为标杆趋同演化?
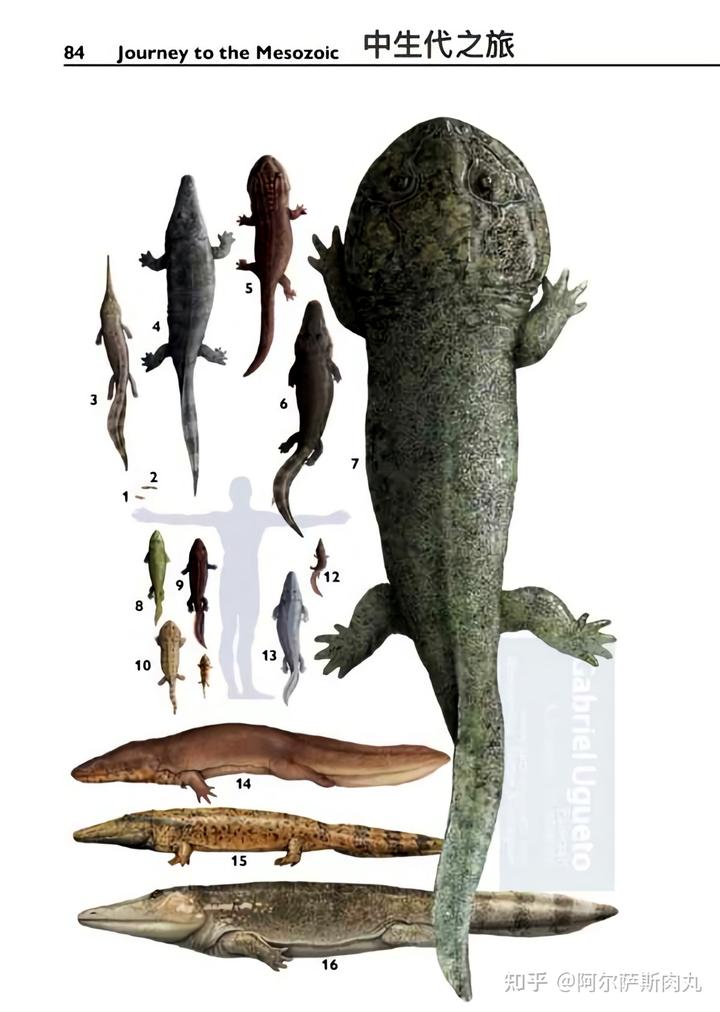
先说结论:“鳄形”外观或者说“鳄化”可以说是很多脊椎动物适应淡水两栖环境的最优解,纵观地球漫长的生命演化历程会发现有多个毫无亲缘关系的类群在不同时期各自独立演化出相似的鳄形特征。这也使得“鳄鱼形态”成为生物学上研究平行演化现象的经典案例。 图中三种看上去很像鳄鱼的动物实际上都与真正的鳄目没有任何关系,它们分别是离片椎目…
先说结论:“鳄形”外观或者说“鳄化”可以说是很多脊椎动物适应淡水两栖环境的最优解,纵观地球漫长的生命演化历程会发现有多个毫无亲缘关系的类群在不同时期各自独立演化出相似的鳄形特征。这也使得“鳄鱼形态”成为生物学上研究平行演化现象的经典案例。
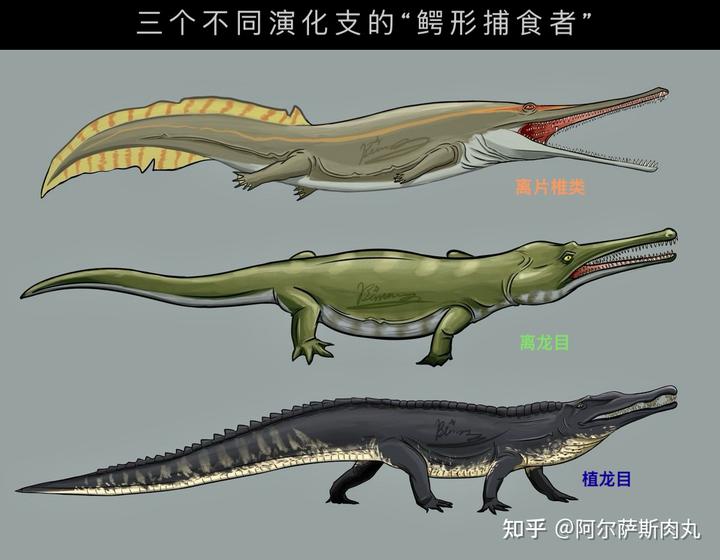
这里我们暂且不论仅在蜥形纲内部就层出不穷涌现出一系列看上去“像鳄鱼但不是鳄鱼”的演化支。哪怕将范围限定到合弓纲和不属于羊膜动物的两栖类“螈神”(广义上的两栖类泛指众多基干非羊膜四足动物)中,它们的多样性也足够让人惊叹。
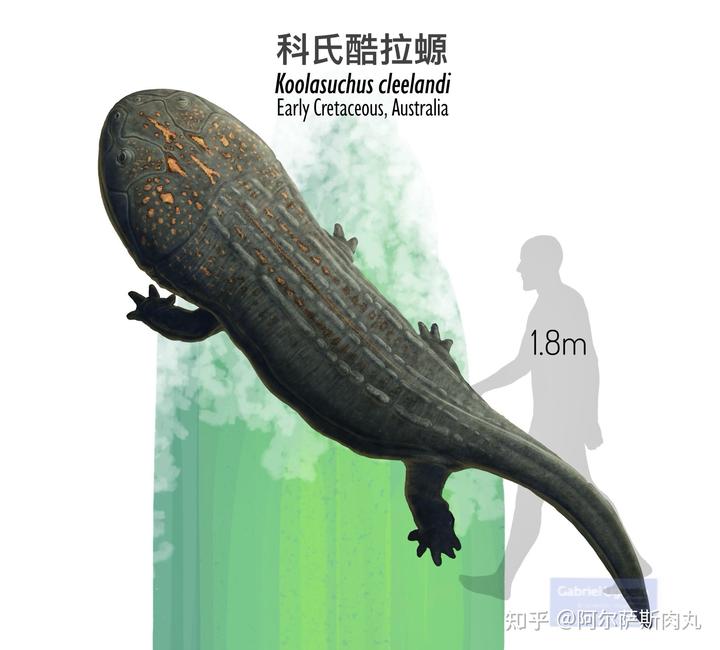
只不过,哺乳类由于自身的高代谢率导致想要像鳄类那样持之以恒的长久占据淡水生态位变得不可能,因此哺乳类版的“鳄鱼”更像是一个过渡阶段的产物。而离片椎类版的“鳄鱼”虽然出现时间更早且也更能抗冻,但与羊膜类更为先进衍化的身体硬件相比,它们最终被取而代之也是意料之中的事情。“鳄形形态”再次印证了一个亘古不变的物种演化真理:一种生理结构特征如果能完美的适应所处环境的选择压力,那么该特征就会在占据相同生态位的不同物种身上反复、多次的出现。
■“哺乳鳄鱼”
在现存栖息在淡水环境中的哺乳类中,既有以水獭为代表的食鱼性小型食肉目;也有像河狸这样能自行建造“堤坝”来改善所在环境自然面貌的啮齿目;更有河马这样能与鳄鱼同居一片水域但却相安无事的偶蹄目;甚至在亚马逊河、恒河、拉普拉塔河、长江这样的河流中也能见到各种淡水豚类的身影……
但要说完全有哪一种半水生哺乳动物可以像鳄类这样日常大部分时间都在水中潜伏狩猎仅在繁殖和休憩的时候才待在水岸边的陆地的话,那么还真没有能够与之完全相对应的竞争选手。
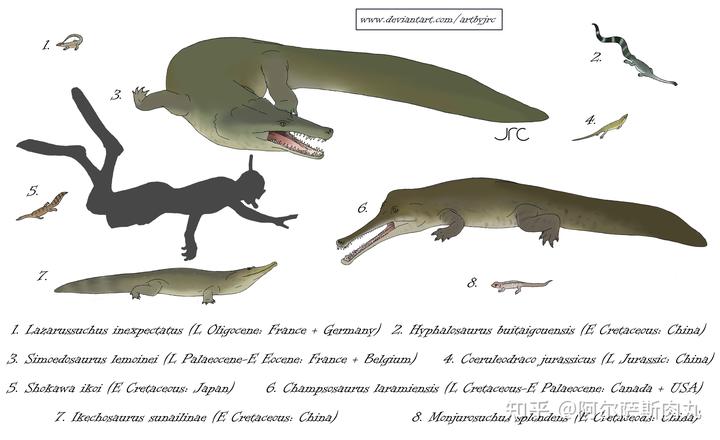
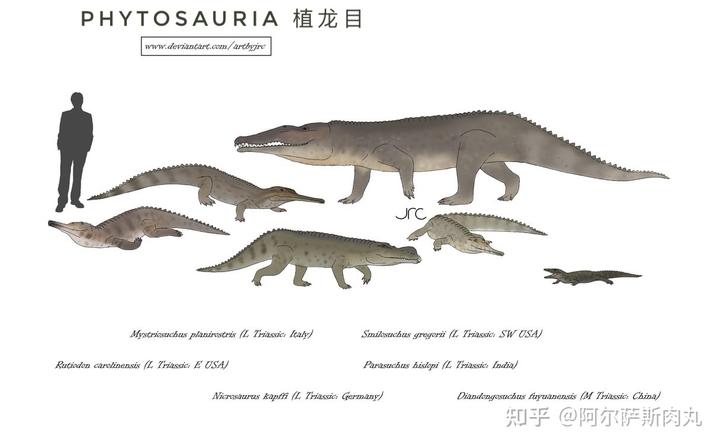
要知道,自从鳄目从三叠纪的前辈植龙目手中接过衣钵继承了“淡水王者桂冠”至今,一路也曾面临诸多挑战者发起的冲击,但最终它们都无法撼动鳄类对这一生态位的绝对统治地位。
甚至即便是各方面都高度趋同鳄类、以鳄龙为代表的大型离龙目虽然也同鳄鱼一样,幸运的躲过了那场白垩纪末期发生的天降浩劫(*K-Pg 灭绝事件),但最后它们还是在风平浪静的新生代无奈走向沉寂。
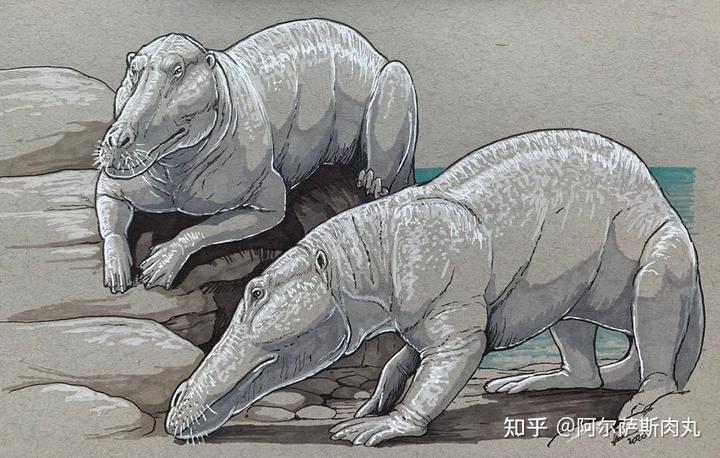
而我们合弓纲阵营这边也同样有物种曾试图染指这个被鳄类长期统治的淡水王国,它们被戏称为“哺乳类版鳄鱼”,在淡水和浅海地带的水陆之间都能看到它们来去自由的身影,它就是——走鲸。
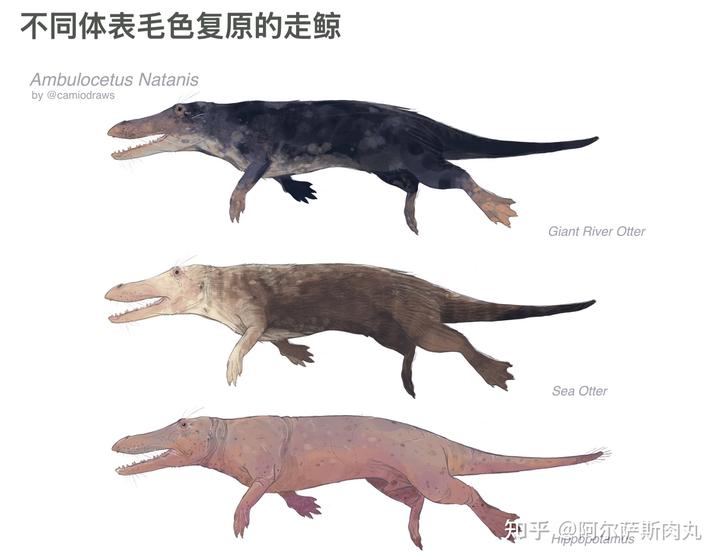
走鲸(Ambulocetus)又名“陆行鲸 / 游走鲸”,属名直译过来顾名思义就是“行走的鲸鱼”,这种生活在距今约 4780~4130 万年前的原始鲸类与今天我们熟悉的完全适应水生环境的鱼型化鲸类有着显著不同。
正如其名字所描述的那样,它们依旧保留有在陆地行走的能力,整体看上去就仿佛是鳄鱼和水獭的杂交产物,而它所在的陆行鲸科(Ambulocetidae)代表了鲸类演化过程中一个相当特殊的过渡阶段。
由于同时具有在陆地行走和在水中潜游的能力,因此古生物学家通过研究走鲸的生理结构和习性为我们揭示出鲸类是如何一步步从典型的陆生偶蹄目,演变为拥有流线型身躯的水生哺乳动物的。
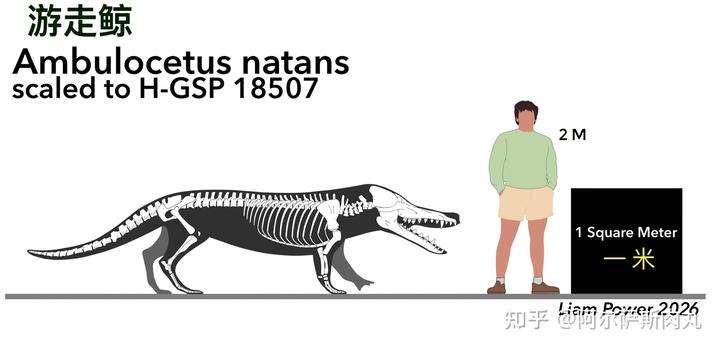
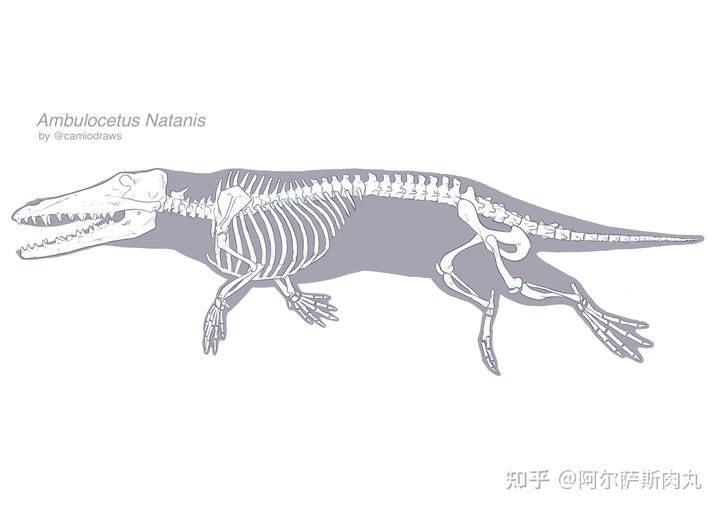
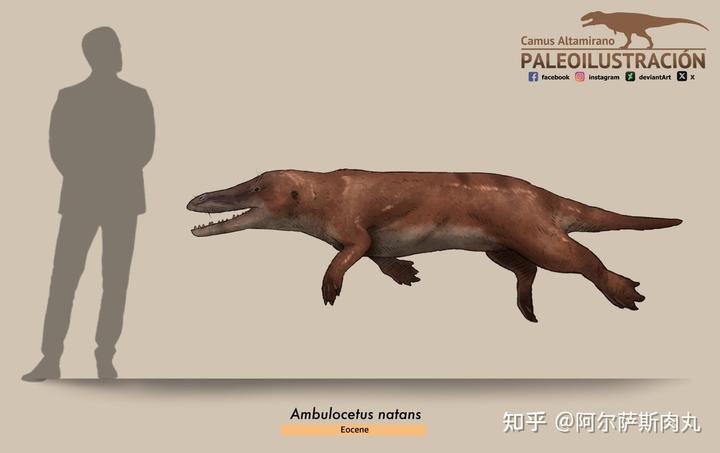
根据其正模标本复原后的推测数据来看,一只成年的走鲸身长估计能达到 3 米、体重大致在 141~235kg 之间,最大体重甚至接近 720kg,基本上与一头现存雄性海狮旗鼓相当!这个体型即便是放在众多鳄鱼家族中都算是相当大的存在了。
尽管在个头上走鲸无法与现在的各种大型鲸类相提并论,但论尺寸也远超巴基鲸这样原始的早期鲸类成员。从它们身上我们也可以看到鲸类的大型化趋势来得非常迅猛,在尚处于水陆两栖过渡阶段时就出现了体型的增大。
走鲸的运动模式可能最接近现代的水獭,它们将整个躯干作为助推器进行波浪式的上下摆动,从而将产生的动能配合尾部的推进作用共同实现水下高速运动。
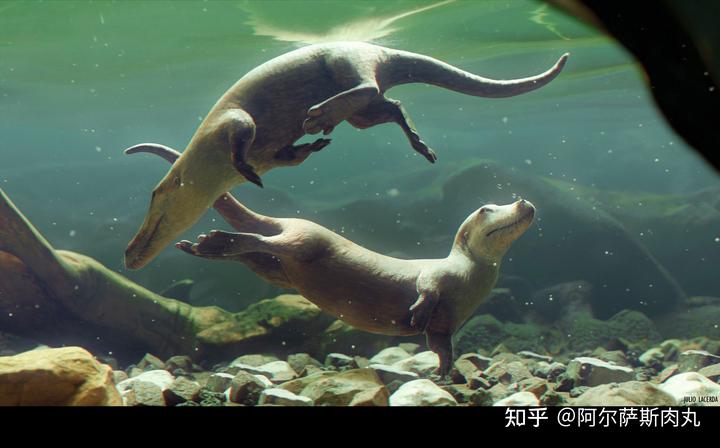
在捕食行为和习性上,走鲸作为“哺乳类版本的鳄鱼”可以说将鳄鱼的那一套狩猎本领模仿得淋漓尽致。
它们通常会静静地埋伏在靠近岸边浅水地带,等待那些前来水边喝水或觅食的动物,然后锁定目标之后出其不意的发动突袭一口咬住猎物后将其拽入水中吞食。尽管还没有演化出现代鲸类那种成熟的弯月型对称尾叶,但它们尾部发达的肌肉依旧能提供不小的助推力。
值得一提的是,研究人员通过分析走鲸的牙齿沉积物质发现:它们不仅广泛活跃于淡水水域,同时还能在河流入海口附近的冲积三角洲和浅海地带出没,这表明早期鲸类经历了一个从淡水到海水、从水陆两栖到完全水生的递进演化模式。
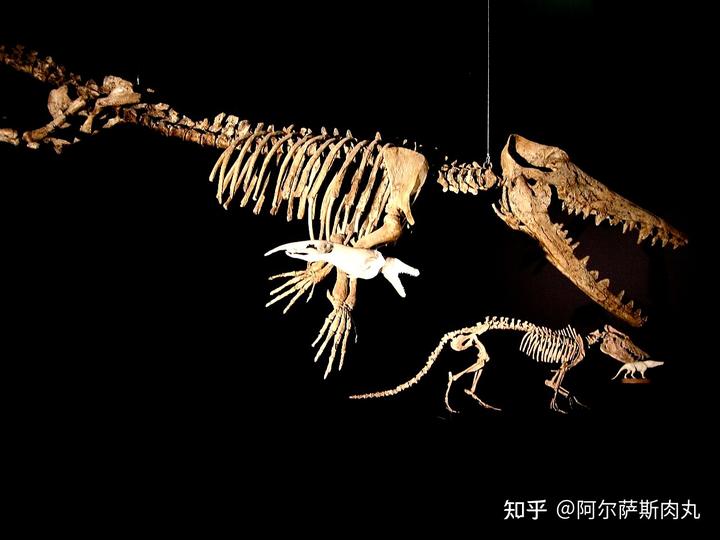
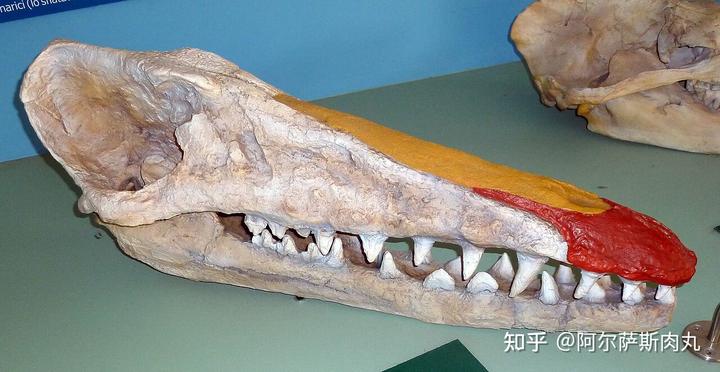
●分类:〔哺乳纲 - 偶蹄目 Artiodactyla- 鲸下目 Cetacea- 陆行鲸科 Ambulocetidae- 走鲸属 Ambulocetus,模式种走鲸 A.natans〕
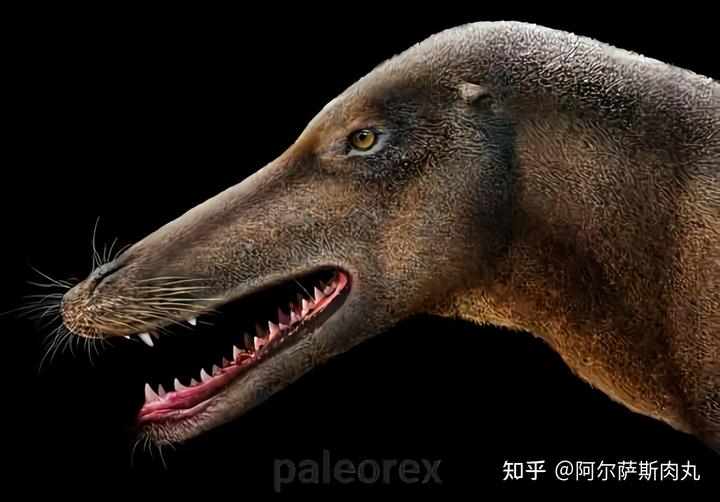
和绝大多数“下海”的哺乳类一样,走鲸的外耳廓也已消失不见,同样的特征也见于鳍足类、海牛目等其他海生哺乳类。因此古生物学家推测,当走鲸在陆地活动时可能会借助将头贴近地面的方式来感受振动并以此确定声音来源方位。
和许多古鲸类的化石一样,走鲸正模标本同样来自始新世时期的南亚地区,如果再加上生存年代更早的巴基鲸、印多霍斯兽等原始陆生鲸类,你就会发现一个以今日巴基斯坦向外辐射扩散的古地中海鲸类演化中心,也再次揭示出南亚是整个鲸类从陆地走向海洋的起点。
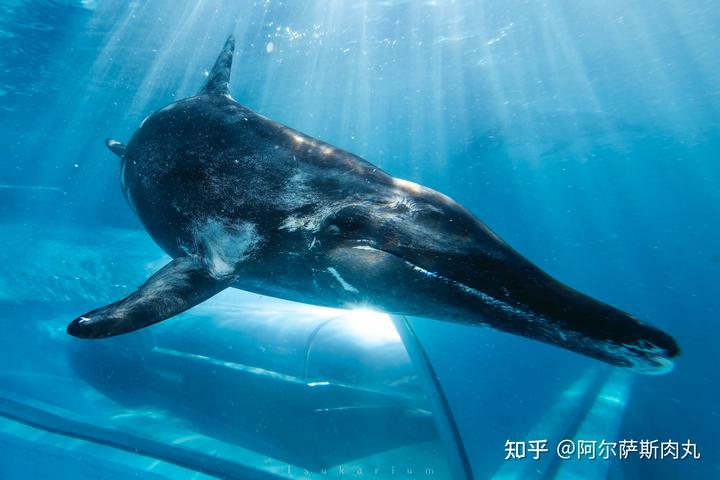
作为一种能够在淡水和海洋两种差异巨大的水域环境自由穿梭的水陆两栖鲸类,走鲸的身上也适应性的演化出一系列与之配套的特征 :
它们修长的吻部前端有用于感知水流震动的胡须、双眼从头部两侧移到了相对靠近颅骨上端的位置,基本上与河马的眼眶位置差不多高。这一特征说明走鲸的视线更方便其身体隐藏在水下时观测水面之上的动静,从而能够在不被猎物发现的情况下发动偷袭。
除此之外,走鲸的耳骨结构也和现代像鲸鱼十分相似,从而能帮助它们在水下游泳时也能听到接收到来自水的声波。并且为了捕食体表光滑的鱼类,它们的牙齿形态也从陆生哺乳类典型的异型齿转变为单一齿型的同型齿。
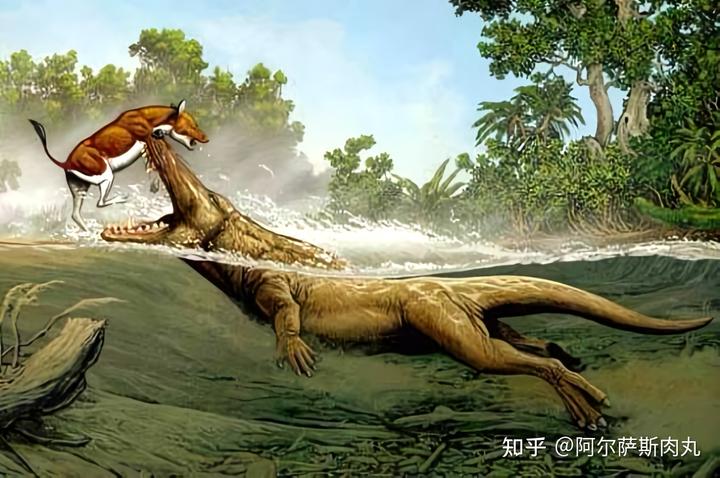
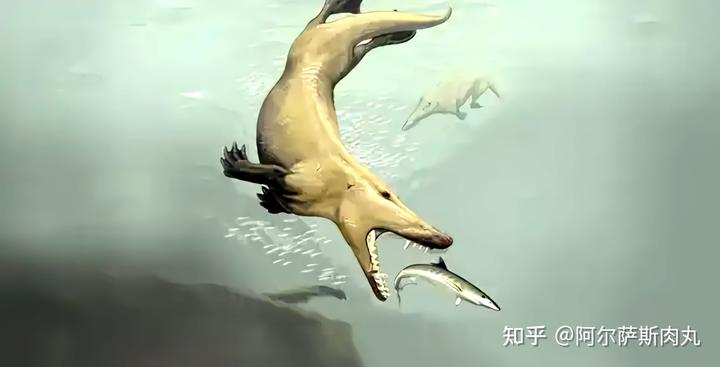
不过比起现代鲸类后代,走鲸反而与高度适应淡水两栖环境的鳄鱼之间有更多惊人的趋同演化特征:狭长的吻部、尖锥状的牙齿、强壮的下颌收肌、高速爆发力让它们成为不输鳄鱼的偷袭能手。
走鲸能在很短的时间内瞬间将猎物咬住,然后再拖入水中溺死,如果猎物太大它还可以配合身体的剧烈甩动进行撕扯,虽然做不到鳄鱼那样的“死亡翻滚”但也能在很短的时间内将大个头的猎物拿下。
对于那些生存在始新世巴基斯坦的陆地动物,即便只是来到湖岸边喝口水也依旧得加倍当心,因为那看似平静的水面下不仅隐藏着真正的鳄鱼,还有走鲸这样的“哺乳类版鳄鱼”在虎视眈眈。
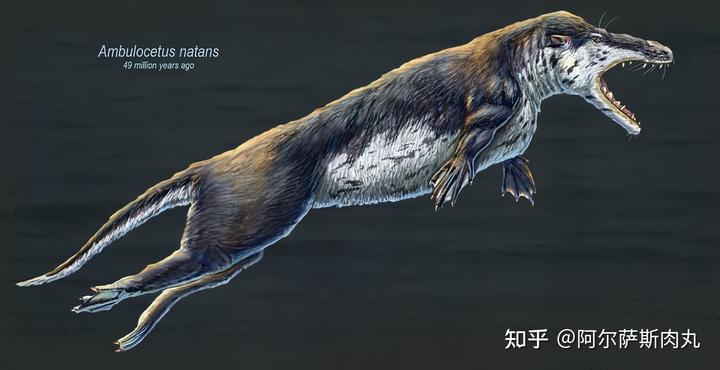
走鲸的前肢比后肢更短且保留有完整的五指,而较长的后肢则仅有四根趾头;另外它们粗壮结实的臂骨也显示出,走鲸虽已相当适应水生环境但它们的游泳速度和耐力都并不高。
再加上骨盆仍然与脊椎骨相连,它们的后肢依旧保留有一定的陆地运动能力,因此鳄类这样的伏击策略才是节能和高效的捕食方式。而类似现代鲸类那样依靠高速追击捕食的能力,得等到完全适应远洋巡游的鲸类出现才能实现。
再加上走鲸缺乏发达的桨叶状尾鳍,它们在水中游泳时可能会像水獭一样,通过依靠带蹼的前后肢互相配合以及身体的大幅度扭动来作为推进器游动。
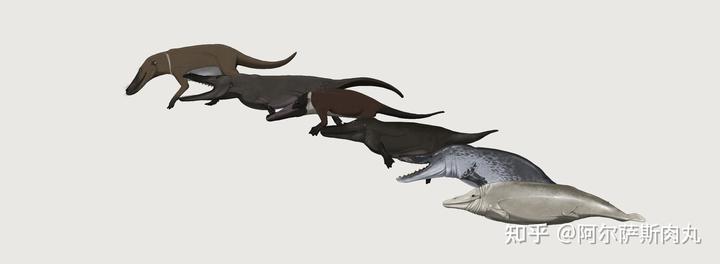
不过一旦回到陆地,它们就远没有在水下那么如鱼得水,只能像海狮等鳍足类那样在地面缓慢移动,因为它们的骨骼结构和四肢已不足以支撑走鲸在陆地快速运动时的自身体重负荷。
从走鲸的身上,我们看到了鲸类四肢经历了一个从保留有完整趾头的带蹼四肢向指骨愈合形成的鳍状肢转变的清晰路线图:
随着更后期鲸类的身体越来越流线型并演化出发达的尾叶状尾鳍,后肢作为辅助的功能就变得越来越鸡肋最终完全消失,只剩下一截不与脊椎骨相连的孱弱骨盆作为痕迹器官遗留在体内。
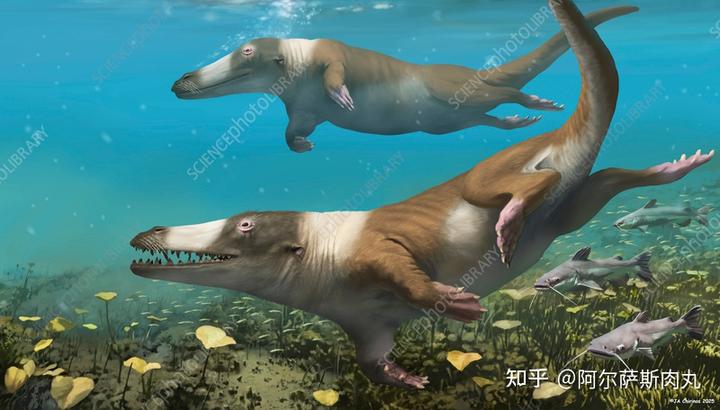
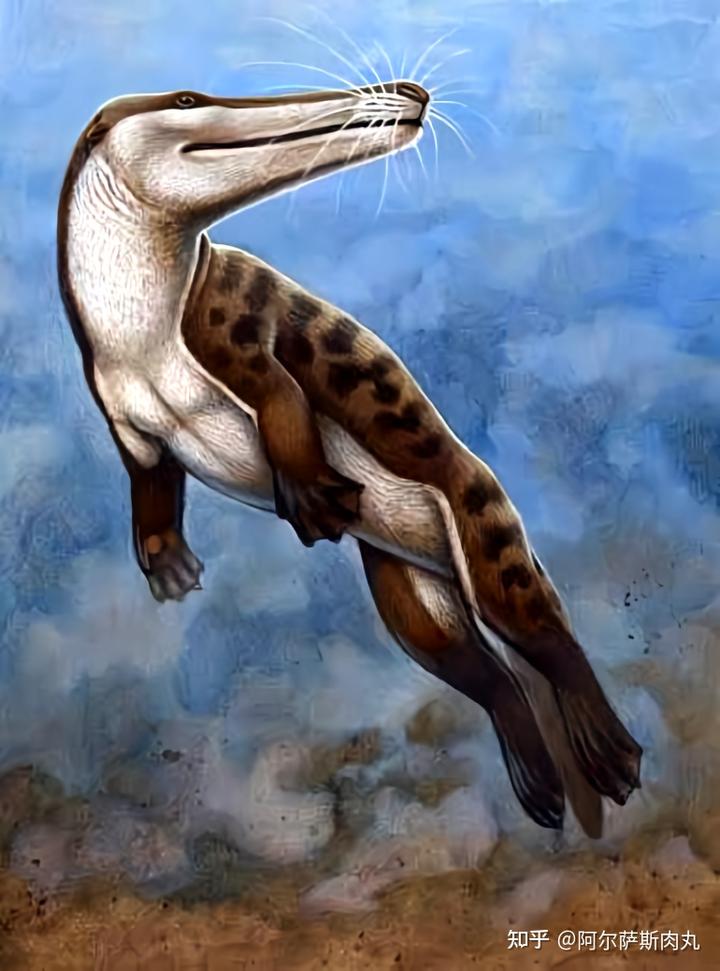
目前发现的许多走鲸化石都来自靠近海岸线的近海沉积物地层,这表明走鲸已开始从淡水向浅海生态位进发,这种从外观到习性都高度酷似鳄鱼的半水生鲸类只不过是鲸类演化历程中的一个插曲,因为它们的征途终点是更为广阔的海洋。
不过关于走鲸鼻孔所在的确切位置依旧存在争议,目前主流的大部分复原图都是在参考其近亲物种的基础上进行的推测还原,因为我们至今尚未发现走鲸吻突前端的完整化石标本。
所以有可能在走鲸这个演化阶段时鲸类的鼻孔位置还依旧长在吻部前端,直到后期随着水生化程度的加深逐渐从吻部前端一路向上,移动到了额头上方并最终特化形成为今天鲸类用于呼吸的喷气孔。
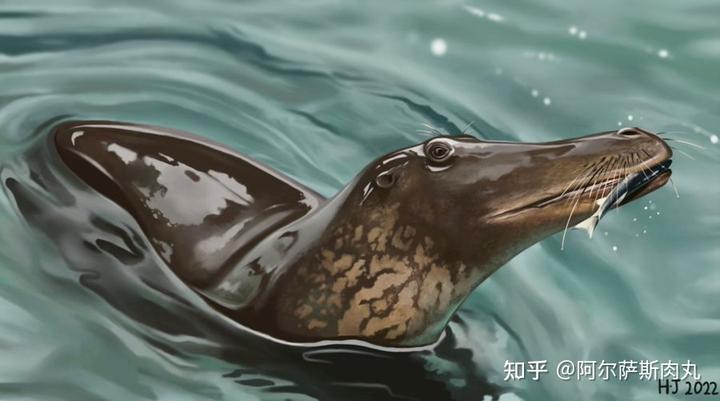
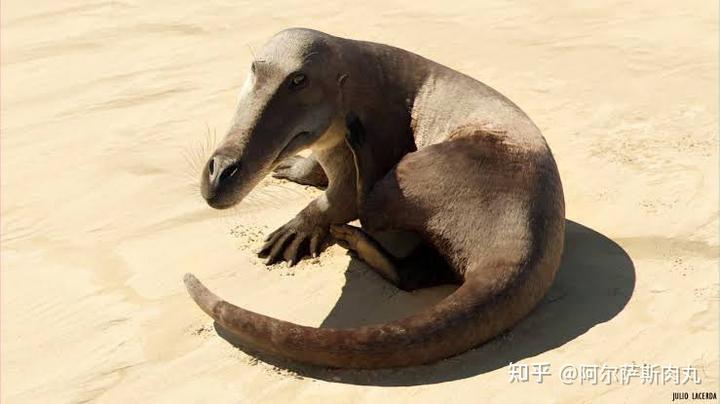
尽管走鲸依旧无法彻底摆脱陆地的束缚但它们的出现表明:鲸类开启水生化历程的速度远比此前所推测的时间更早。
它们的骨密度、肋骨结构、肩带、骨盆和四肢结构虽然依旧残存了许多陆生哺乳类动物的特征,但从走鲸身上我们可以看到鲸类奔向大海的“决心”。
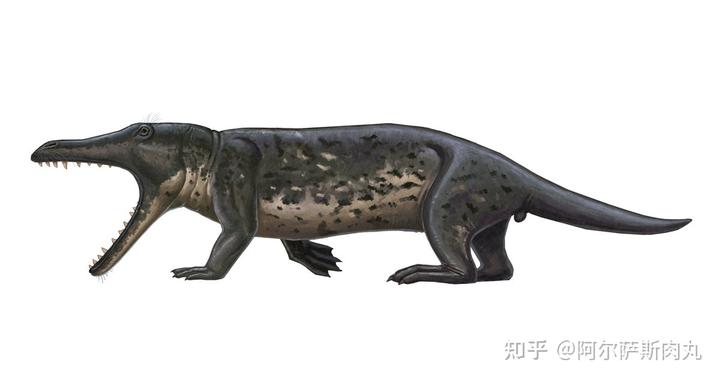
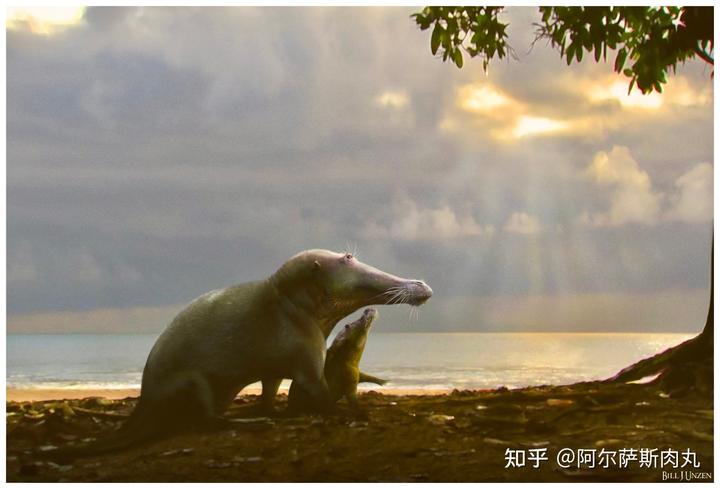
尽管走鲸已经是整个合弓纲演化支里将鳄鱼形态模仿到极致的代表,但它们作为典型的哺乳动物所具备的一些生理特征在淡水环境中反而成为了某种桎梏。
在陆地上,更高的新陈代谢和心肺速率让哺乳类能够在与各种陆鳄类的竞争中胜出,但在需要长时间蛰伏、低能耗的淡水环境中,更低的代谢就意味着更少的能量消耗。所以即便两者在形态上高度相似,但鳄类最终经受住考验得以胜出,时至今日它们依旧是淡水王国唯一的统治者。
而我们也不必为鲸类感到惋惜,因为它们很快就越过了走鲸所在的水陆两栖过渡阶段,一头扎进了更为广阔且食物资源更充沛的海洋,最终崛起为新一代的海生羊膜类霸主,也为合弓纲开辟出一个前所未有的崭新生态位。
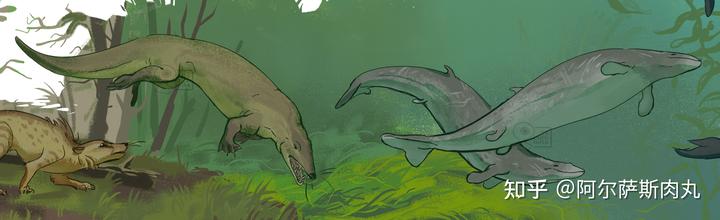
■“螈神出击”——鳄型先驱者
然而,假如我们真的要讨论谁才是“鳄鱼形态”的这一万能演化模板的开创者,那么离片椎类或许才是这一生态位的真正开山鼻祖。
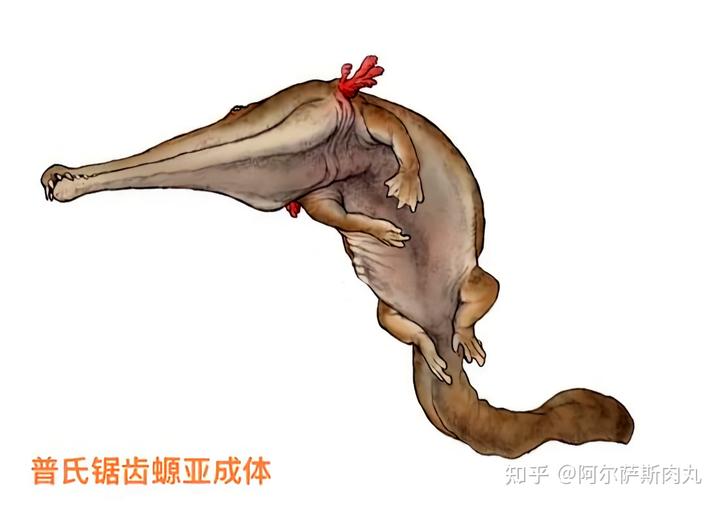
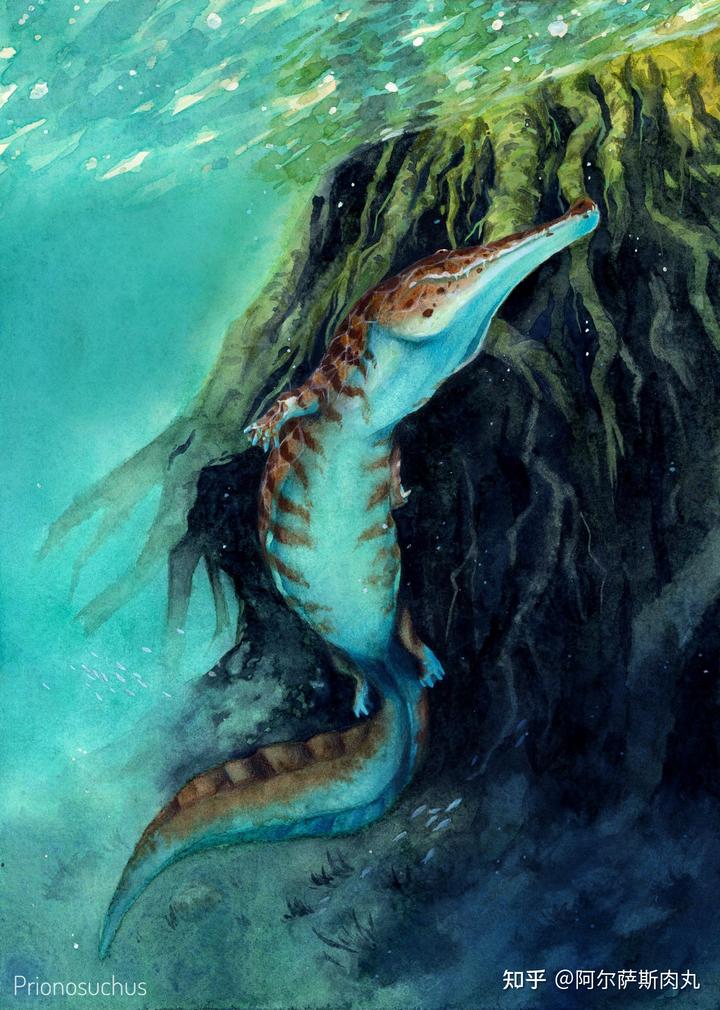
锯齿螈(Prionosuchus)是一种已灭绝的大型离片椎目成员,生存年代是距今约 2.99~2.72 亿年前的早二叠世阿瑟尔期~空谷期,彼时羊膜类两大阵营之间的“龙兽争霸战”还未见端倪,各种离片椎目才是陆生脊椎动物的中流砥柱。
正模标本出土自现今南美洲的巴西东北部地区,推测成年后的体长最大甚至可达到 5 米以上(* 注:该数据为推测的最大极限个体长度),修长的颅骨、尖锐锋利的牙齿揭示出它们具有和后来鳄类高度相似的习性和运动模式。
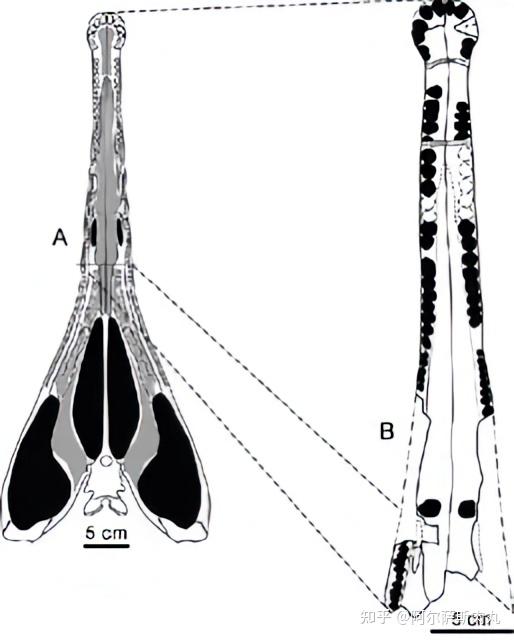
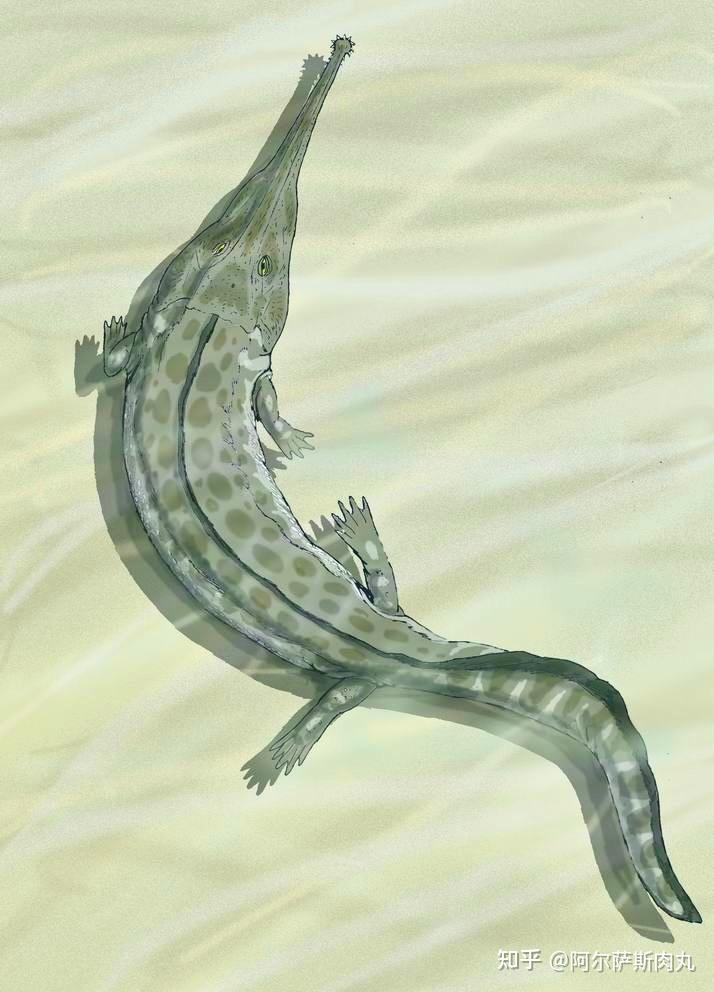
●分类:〔离片椎目 Temnospondyli- 先驱螈科 Archegosauridae- 锯齿螈属 Prionosuchus,模式种普氏锯齿螈 P.plummeri〕
模式种普氏锯齿螈的化石发现于巴西东北部巴纳伊巴盆地(Parnaiba Basin)的火石城组(Pedra do Fogo Formation),该地因盛产燧石故而得名,从葡萄牙语直译过来的意思就是“火之石之地”。
正模标本于 1948 年被正式描述和命名,仅头骨碎片拼合复原后的长度就有 50cm 长,不过这个尺寸其实还不是锯齿螈家族的体型上限,因为后续古生物学家还发现了个头更大的成员存在,也刷新我们对离片椎类大型化的认知。
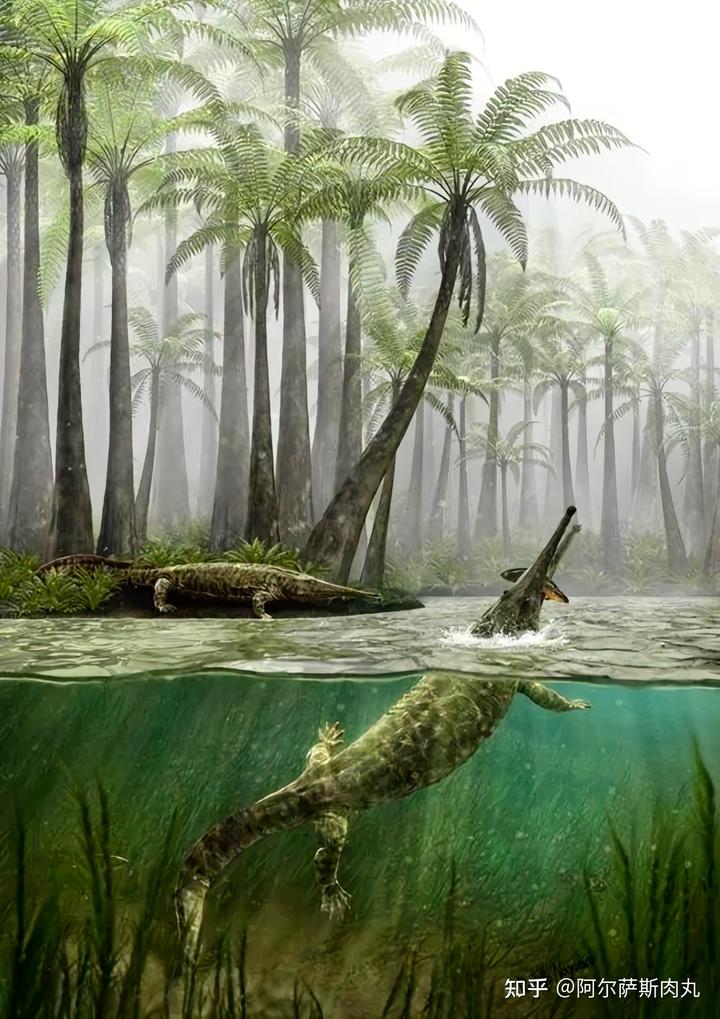
在差不多 3 亿年前的古生代,此时距离真正意义上的鳄类出现还有亿万年的时间尺度,因此锯齿螈就成为了这一时期当之无愧的“初代”淡水霸主。
迄今为止发现的最大的锯齿螈化石是一具破碎的不完整标本(编号:BMNH R12005),仅头骨长度估算就有惊人的 1.6 米!结合现存的大型滑体两栖动物的生长速率和发育模式推测,该个体完全成年后的体长甚至能超过 5.5~6 米……(* 此前 9 米的体长数据目前被认为存在夸大)
毕竟二叠纪早期的羊膜类动物还在起步阶段,它们距离真正的大型化还尚需时日。以锯齿螈为代表的离片椎类凭借着先发优势成功开启了体型增大的演化路线,它们顺势崛起为脊椎动物中第一代淡水环境的顶级捕食者。
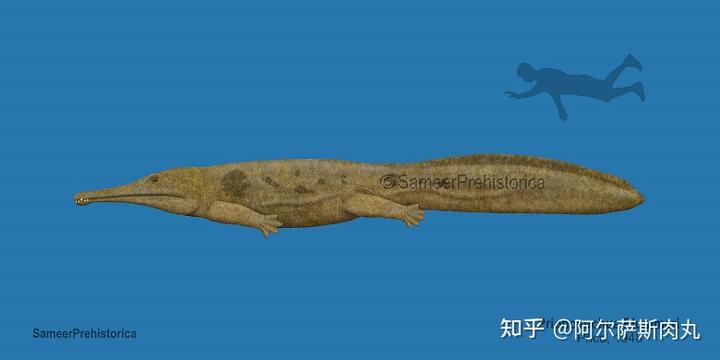
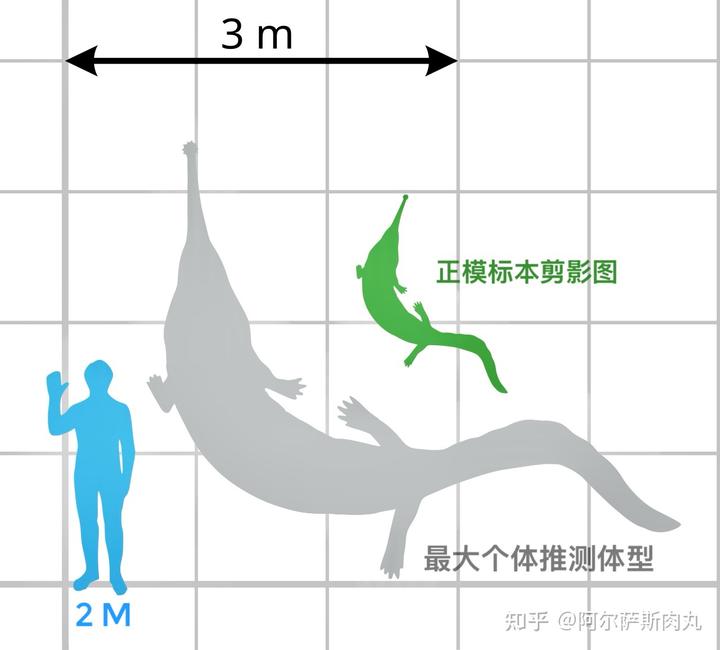
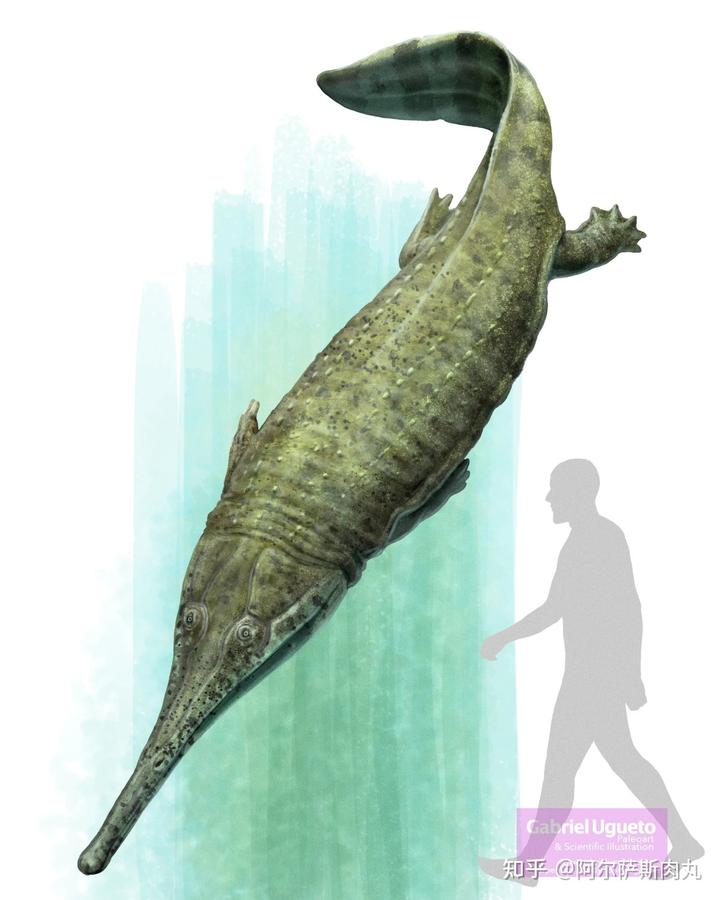
从它们那修长结实的吻部、大量锋利的牙齿,短腿和粗壮的长尾巴等特征不难看出,锯齿螈活脱脱就是一个“离片椎类版的食鱼鳄”,那些后续占据类似生态位的植龙、鳄类和离龙都不过是在复制它们走过的路而已。
作为锯齿螈的近缘物种,先驱螈保留下了更多更完整丰富的化石,一项针对先驱螈类的最新研究结果发现:体型庞大的锯齿螈在代谢率和生长速率上更接近鱼类而非现代两栖动物。
也就是说,现代滑体两栖类动物的发育生长速率是自己独立演化的产物,而非直接继承于离片椎类祖先。
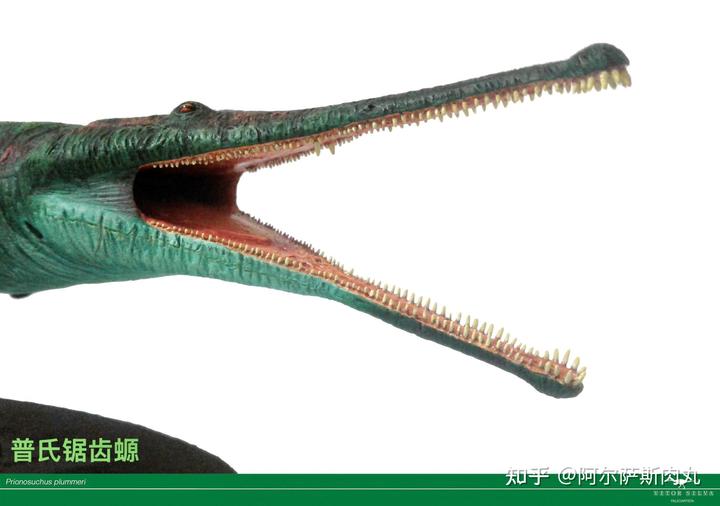
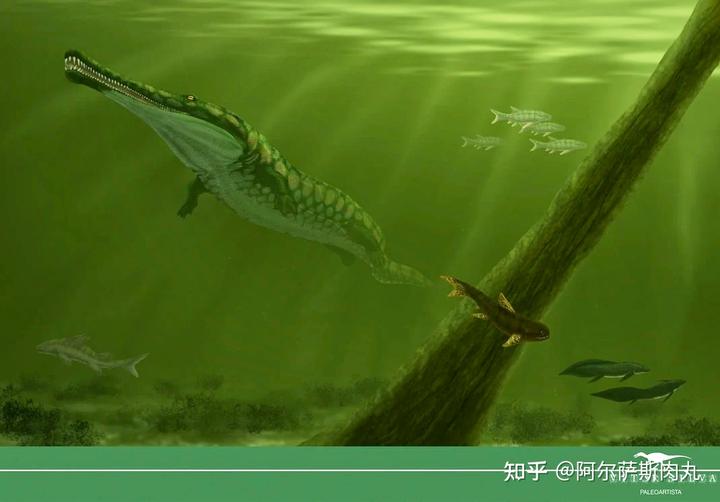
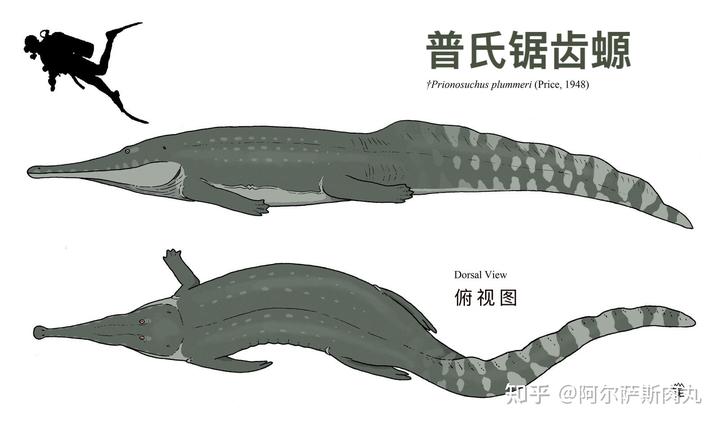
先驱螈科(Archegosauridae)是离片椎目下的一个科,其中的大部分成员都繁盛于二叠纪时期,最有名的代表物种就是上面提到的锯齿螈属。由于内部差异和多样性较大,先驱螈科得以迅速抢占了二叠纪淡水环境的各个生态位,成为最成功的一类离片椎目动物。
与后来的鳄目一样,该科的各个类群为适应不同的捕食需求和环境分化出了差异明显的两种形态。
它们分别是分别是有着长吻部的平面螈亚科(Platyoposaurinae)和吻部较短的獾螈亚科(Melosaurinae)。
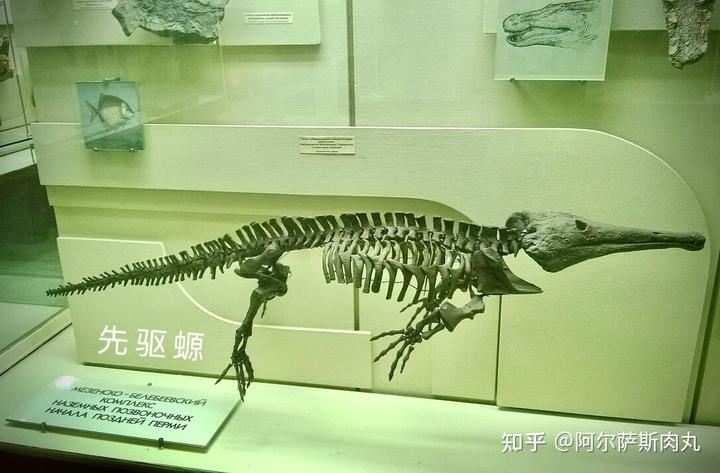
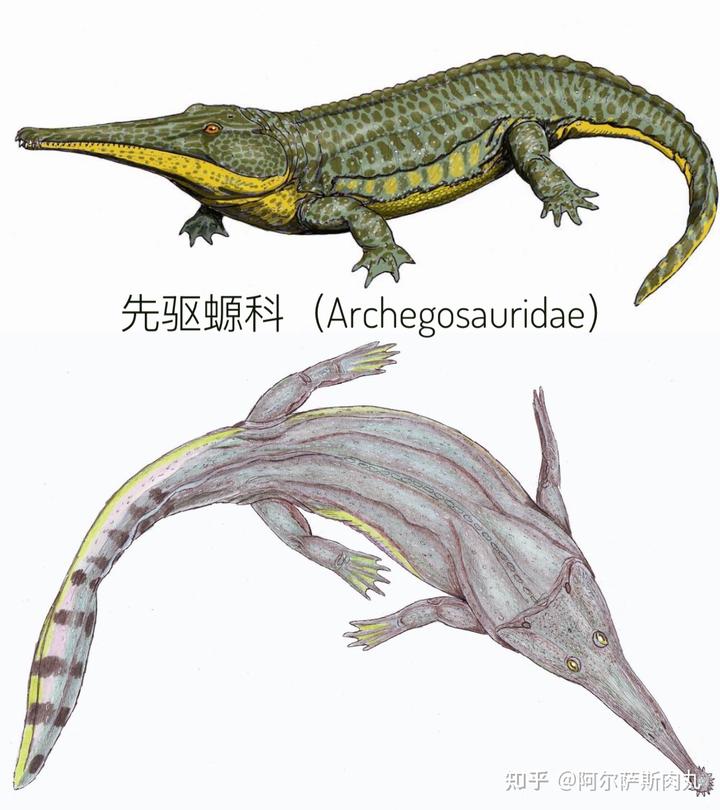
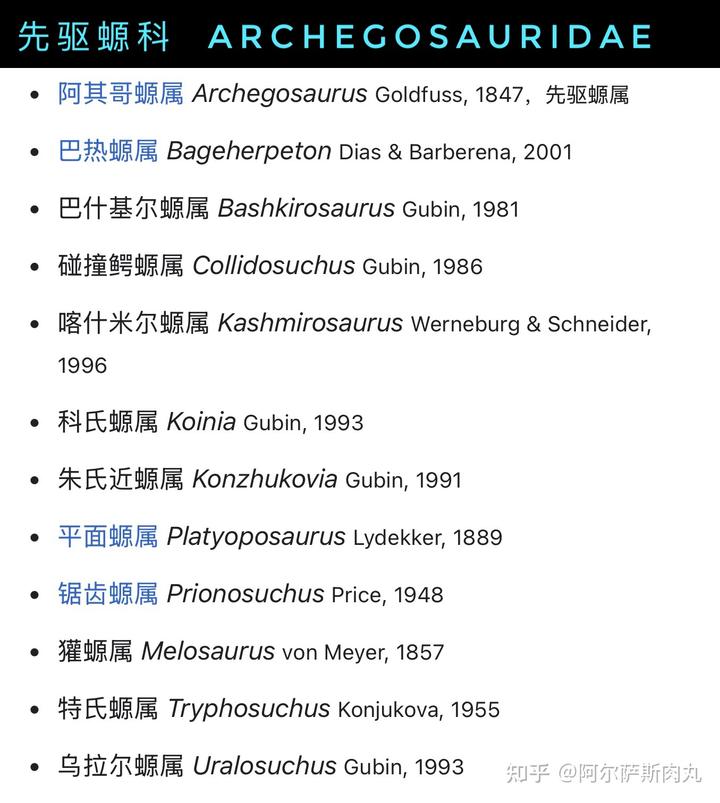
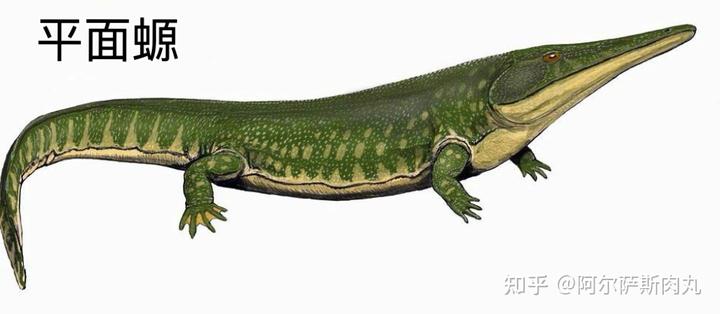
平面螈(Platyoposaurus)同样生活在二叠纪中期的淡水环境中,目前发现的正模标本来自一具成年个体,包括一个长约 28cm 颅骨和椎骨碎片,推测其体长约有 250cm 左右。
化石出土地是俄罗斯境内的巴什科尔托斯坦共和国的别列别伊市,属名直接翻译过来的意思就是“扁平脸的蜥蜴”,故而中文名译为“平面螈”。
除模式种里氏平面螈(P.rickardi)外还发现了另外两个种,分别是斯氏平面螈(P.stuckenbergi)和沃氏平面螈(P.watsoni)。
以阿其哥螈和平面螈为代表的先驱螈科成员,基本都是一群擅长捕食鱼类、软体类和甲壳动物为食的两栖动物,它们正好与大型的锯齿螈属形成互补,很好的填补了当时淡水环境里中小型生态位的角色。
随着它们对淡水生态位的分化适应,许多离片椎类成员都开始出现了不同程度的“鳄化”现象:它们的脊骨逐渐弱化、四肢变得更为短粗、颅骨演变得扁平而修长、眼睛的位置也越来越靠上……
在锯齿螈销声匿迹之后的二叠纪晚期,以短头鲵科为代表的大型离片椎类接过它们的步伐成为新一代的淡水统治者,并且一路从晚二叠纪繁盛到了早三叠纪,直到新的继任者出现。
离片椎类作为淡水王国的统治者地位最终还是无可避免的遭到了严峻挑战,并且这次的攻擂者来自各方面都更为先进的主龙类。
进入中生代之后的三叠纪,以植龙目为代表的新一代“鳄形捕食者”异军突起,它们无论是从各项生理机能还是大型化方面的潜力来看,作为羊膜类动物的植龙目对离片椎目都有着几乎是压倒性的优势。
从石炭纪开始历经整个二叠纪到三叠纪早期,整个离片椎目家族都可以说相当兴旺昌盛,从陆地到淡水甚至是浅海环境,它们的化石遗迹都有着相当广泛的分布。
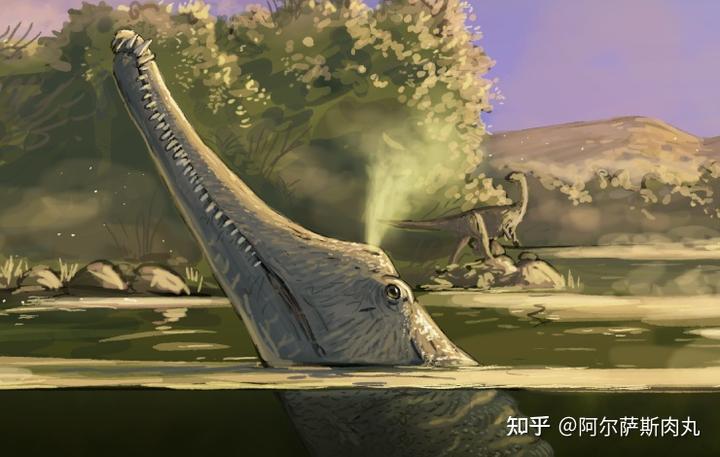
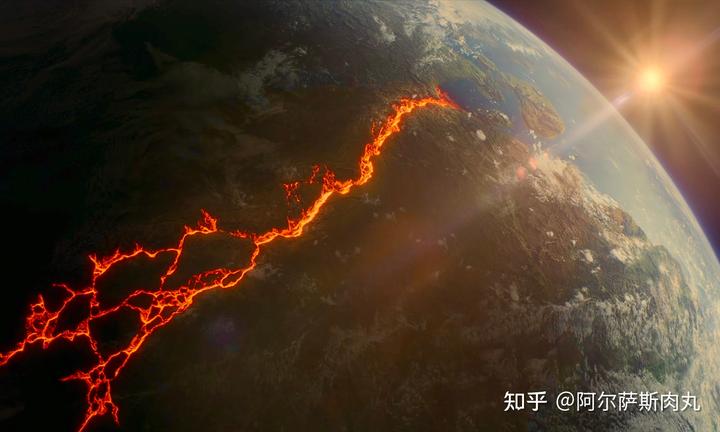
然而祸不单行的是,在被后起之秀植龙目抢占了原有的优势生态位之后,紧随其后的三叠纪~侏罗纪灭绝事件又把残存的大型离片椎目几乎一锅端,仅剩下长吻迷齿螈下目的短头鲵科和小嘴螈科两个支系在冈瓦纳大陆苟活。
但即便是在植龙和鳄类的双重夹击下,依旧有一些大型的离片椎类挣扎求生延续到了白垩纪的阿普第期才灭绝。除现存的滑体类两栖动物这一支幸存下来的独苗外,整个离片椎类的其他旁支都消失在了地球生命漫长的演化洪流中。
l 结 语
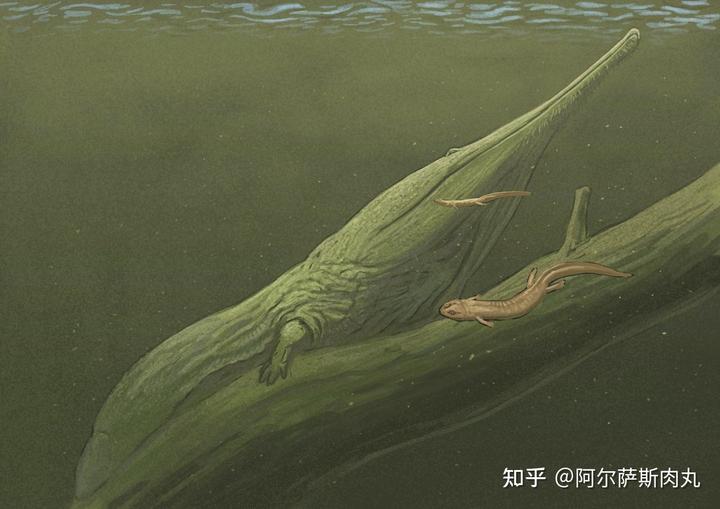
走鲸代表的“哺乳类版鳄鱼”是鲸类从陆生向完全水生化方向演化过程中的一个过渡节点。由于哺乳类更高的代谢活动,因此无论是陆行鲸类还是现代的水獭都无法做到像低代谢的鳄类那样长久的潜伏于水面之下。锯齿螈则代表了早期非羊膜类脊椎动物对淡水生态位的尝试,它们率先成为初代“鳄型捕食者”并开创了前所未有的巅峰,证明了“鳄化形态”是适应淡水环境的最优解。
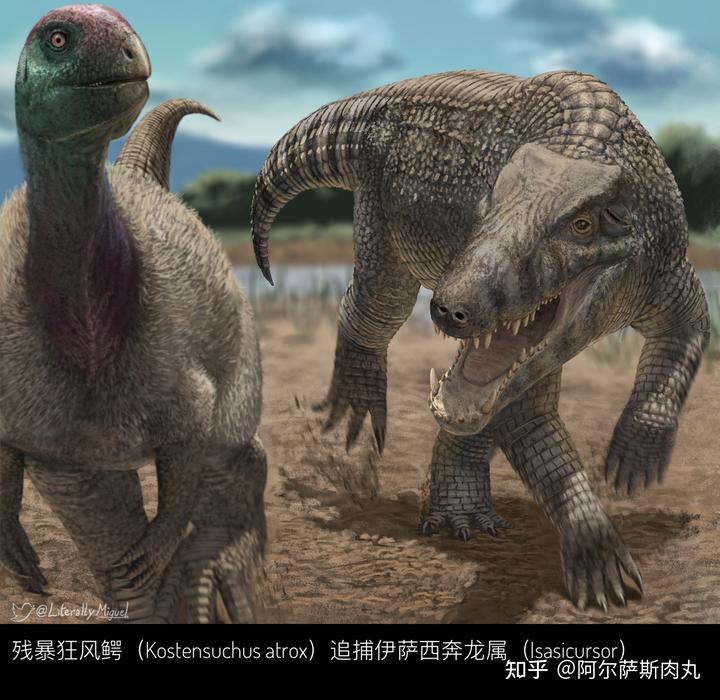
只不过因为各种机缘巧合,最终只有鳄类将对淡水生态位的统治地位延续至今,并且在保住这个“基本盘大本营”的同时它们还积极向陆地和海洋探索更广阔的空间。即便最终陆鳄类和海鳄类所占据的生态位最后都归于沉寂,但鳄目对淡水环境的绝对性优势只要还存在,那么它们就不必担心种群的存续。【THE END】
原文出处:知乎日报 (本文由聚合程序自动采集,版权归原作者所有)