为什么鱼龙已经进化出完美的流水线身体,还会被身体像蛇的沧龙所取代?
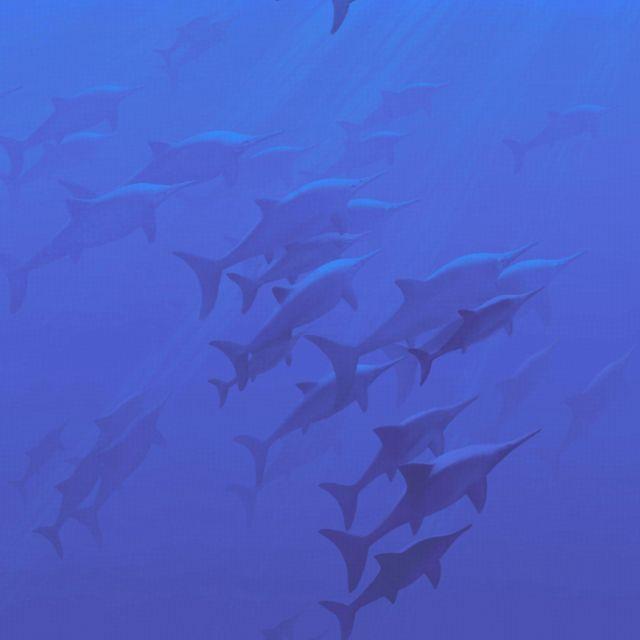
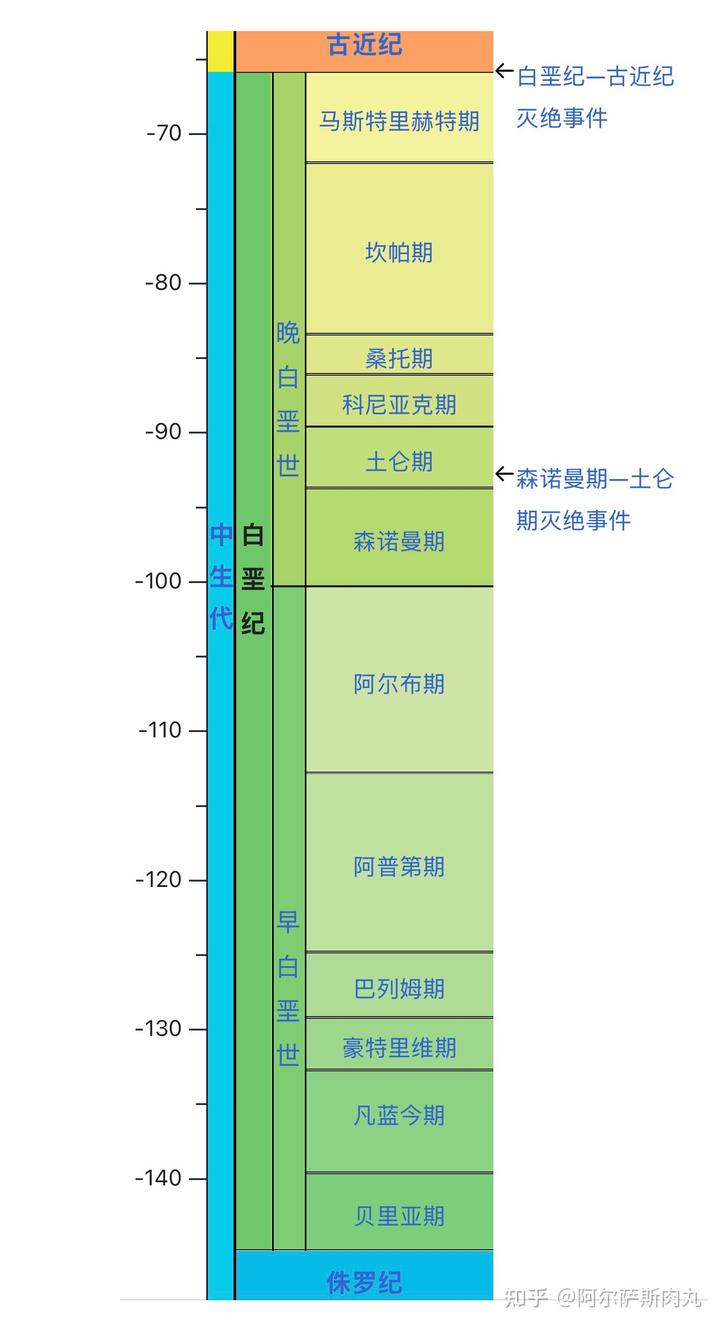
所谓“鱼龙是被新崛起的沧龙取代最终才灭绝的”说法本身就是个伪命题。从地质年代来看就会发现最后的鱼龙种群与最早的沧龙类之间还未发生正面交锋就失之交臂了,毕竟整个鱼龙目在白垩纪的森诺曼 - 土伦阶灭绝事件之后就彻底销声匿迹。而作为中生代海爬最后一抹余晖的沧龙,则是和非鸟恐龙、翼龙、蛇颈龙类等其他物种一道在白垩纪 - 古近纪…
所谓“鱼龙是被新崛起的沧龙取代最终才灭绝的”说法本身就是个伪命题。从地质年代来看就会发现最后的鱼龙种群与最早的沧龙类之间还未发生正面交锋就失之交臂了,毕竟整个鱼龙目在白垩纪的森诺曼 - 土伦阶灭绝事件之后就彻底销声匿迹。而作为中生代海爬最后一抹余晖的沧龙,则是和非鸟恐龙、翼龙、蛇颈龙类等其他物种一道在白垩纪 - 古近纪灭绝(K-Pg)事件中灰飞烟灭。
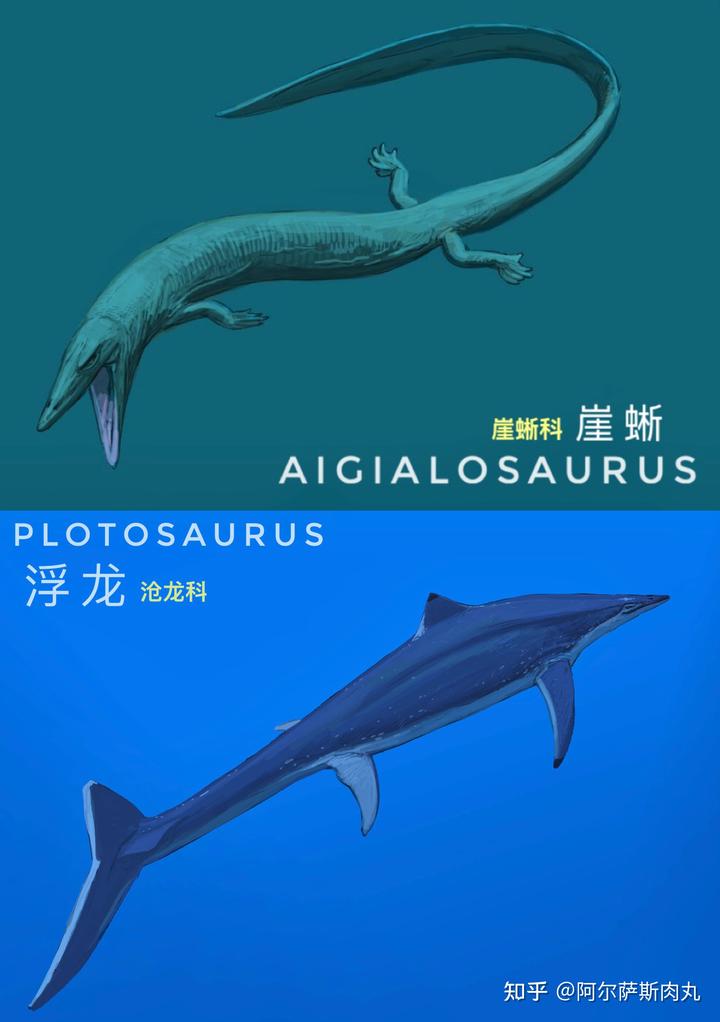
尽管鱼龙类和沧龙类在演化关系上并没有任何亲缘联系,但它们所占据的生态位以及在外型上的趋同性都成为了研究不同物种之间发生平行演化案例的经典研究案例。
沧龙的异军突起其实和三叠纪末期恐龙总目的全面崛起有着异曲同工之处,两个物种都是在一场扫除了竞争对手而留下空缺生态位的灭绝事件中因祸得福,最终趁势崛起成为优势类群。
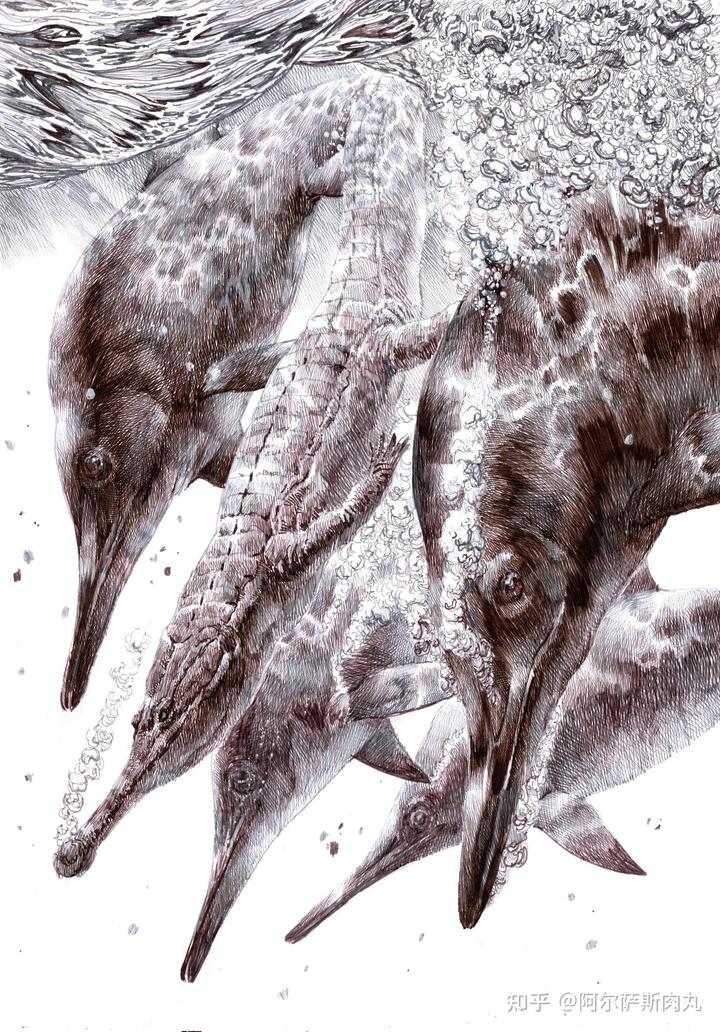
所以说,纵观很多物种的演化历程就会发现这其中相当多的不确定偶然因素才是关键,它们的崛起并不一定总是“先进”取代了“落后”这么单一、简单的叙事模式,很大程度上其实都是因为生态位的真空给那些曾经处在边缘位置的物种有了“翻盘”的机会。
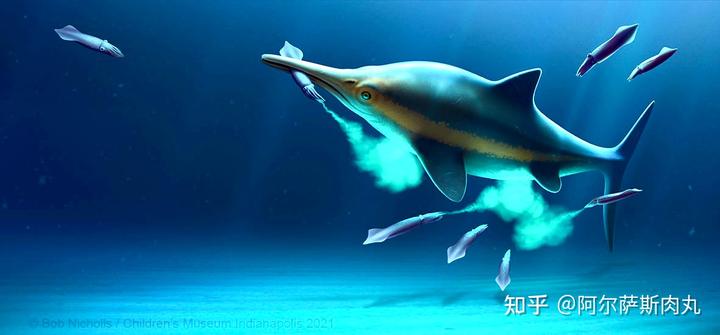
沧龙也并非如很多人以为的那样是导致鱼龙衰败的“掘墓人”,它只是那次灭绝事件中恰好抓住真空期逆袭成功的幸运儿罢了,即便没有沧龙出现也会有另一个边缘物种填补“上位”。
不过有一点可以肯定的是:假如没有那场来自天外的飞来横祸打断了沧龙正处在上升期的演化进程,它们最终蜕变为鳞龙版的“鱼龙 2.0”也是板上钉钉的结果。
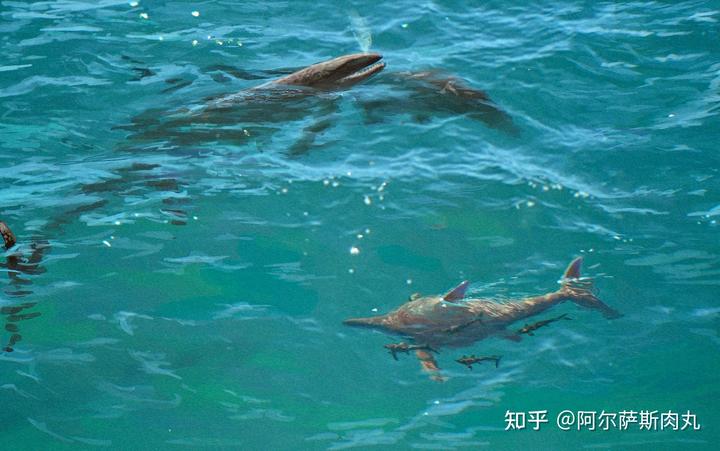
当我们回溯鱼龙这个堪称中生代最为传奇的海爬明星绵延亿万年的演化史,就会感叹即便是如此成功具备完美流体力学的物种最终也无可奈何走向了沉寂。
而戏剧性的是,接过它们衣钵的沧龙居然也在非常短的时间尺度内再次复刻了鱼龙曾经走过的演化道路,一步步的实现了从“蜥”到“鱼”的蜕变,只不过生不逢时的沧龙没能像前辈鱼龙和后辈鲸类那样完全实现“鱼形化”就黯然退场。
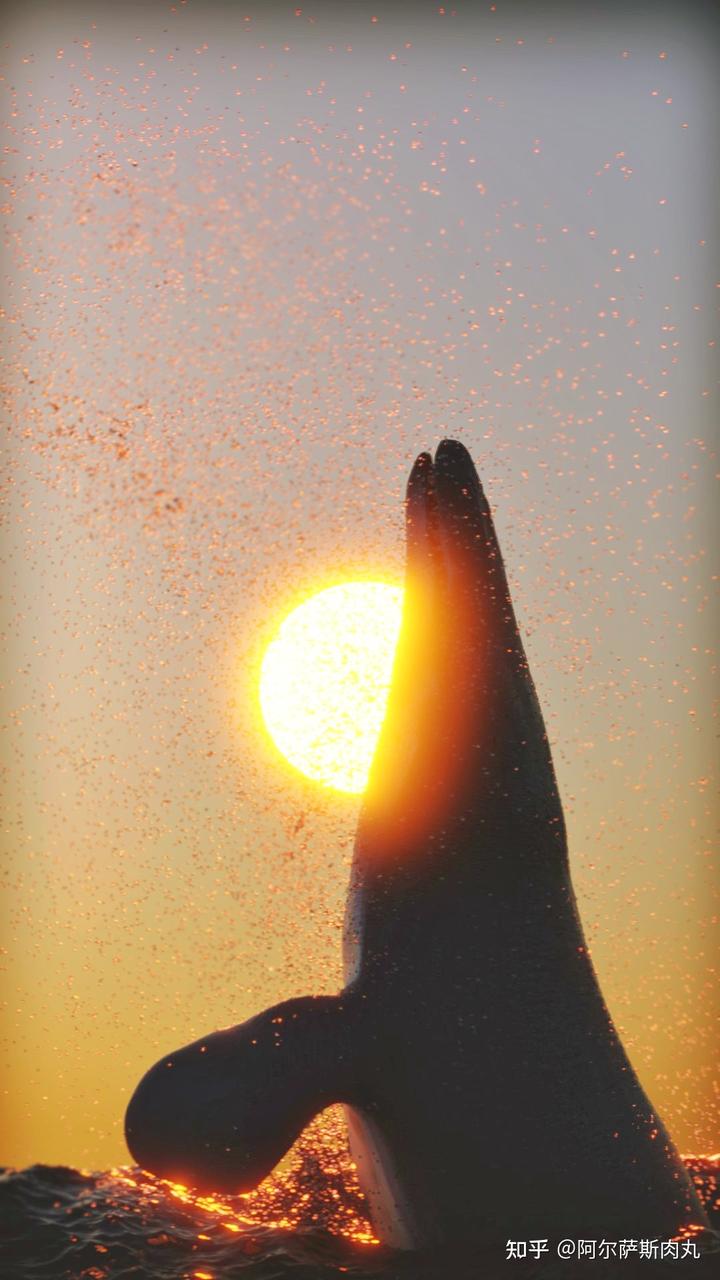
这也从侧面说明鱼龙这套“鱼形化”演化模板是成功且具备普适性的,除了沧龙外新生代的海洋哺乳动物——鲸类也走上了几乎与之相同的演化路线,可以说除了一些剑走偏锋的类群,“鱼形化”是绝大多是海生羊膜类的演化终极形态。
物种从来不会主动的去选择自己演化的方向,它们只不过是在面临相同的自然选择压力下各自发生了殊途同归的被动适应性演化。
只要一个衍征能够应对相同的环境选择压力确保种群能够一代代繁衍下去,那么这个性状就会在不同时空、不同地区和不同类群的物种身上反复出现。
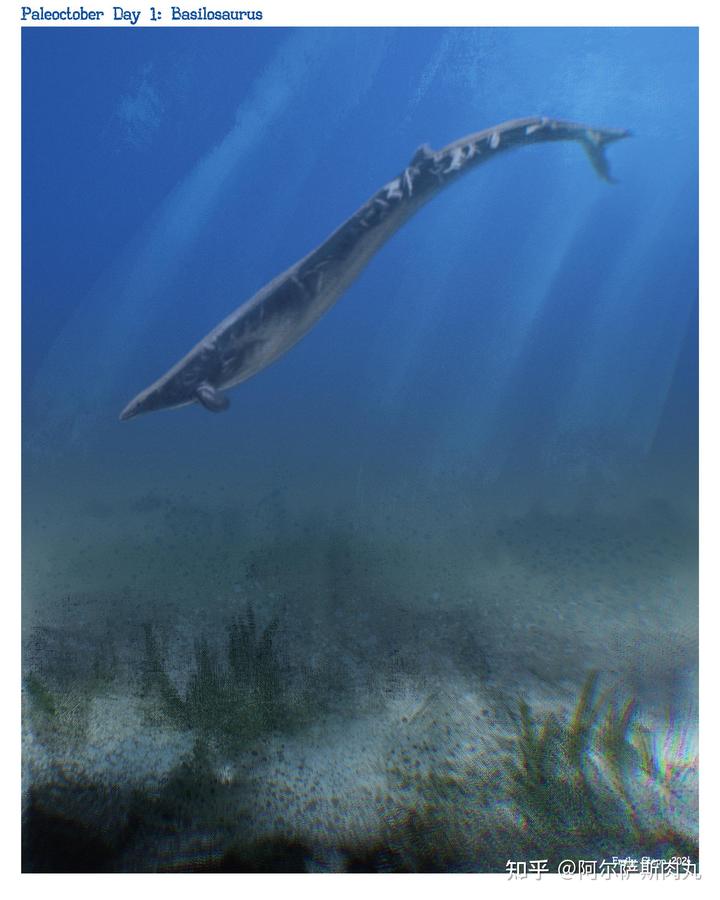
无论是从物种灭绝的种类和数量还是对整个生态系统所造成的影响来看,森土灭绝事件显然都无法与更早之前发生的三叠纪晚期大灭绝和后面的白垩纪末期大灭绝事件相提并论。
但这次规模有限的灭绝事件仍然对当时的陆地和海洋物种的生态位格局起到了一定的“洗牌”作用,只是由于它波及的种群范围没有那么广泛所以受到的关注度也没有那么大。
以森土事件为分界点,自此之后的白垩纪陆生和海生脊椎动物的种群面貌都发生了明显的分化和重整,除鱼龙之外很多我们耳熟能详的动物都在这个时期消失了,包括棘龙、鲨齿龙、上龙等众多形形色色的代表类群都在 K-Pg 大灭绝到来之前就提前“下线”了。
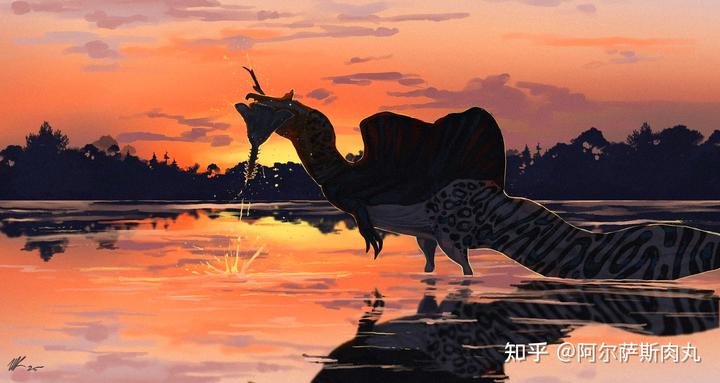
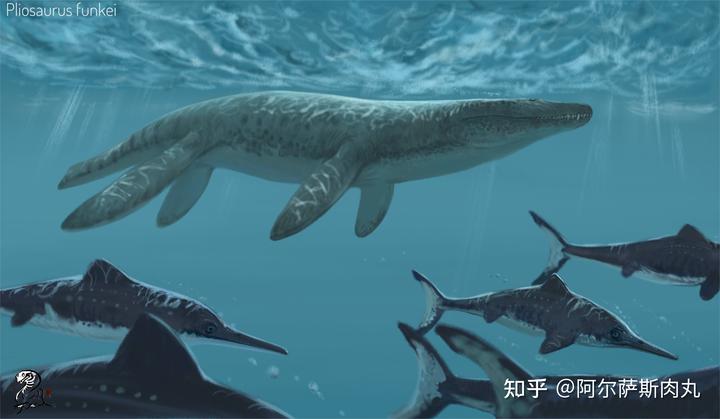
森诺曼期 - 土仑期灭绝事件(Cenomanian-Turonian Boundary Event)作为白垩纪漫长地质史上发生的一次小规模灭绝事件,它对海洋生态系统的打击其实非常明显。
这次由大规模缺氧所引发的海生物种灭绝事件导致海水中的碳循环发生了剧烈扰动,根据正碳同位素偏差显示当时海水中的氮、氧、磷、硫和铁循环也同样存在剧烈波动。
伴随着酸度的升高,越来越多的碳酸盐溶解到了海水中并进一步释放出更多的二氧化碳,这种异常的海洋酸化现象结合海洋生物的异养呼吸作用不断加剧从而不断拉低了海水中的 PH 值。
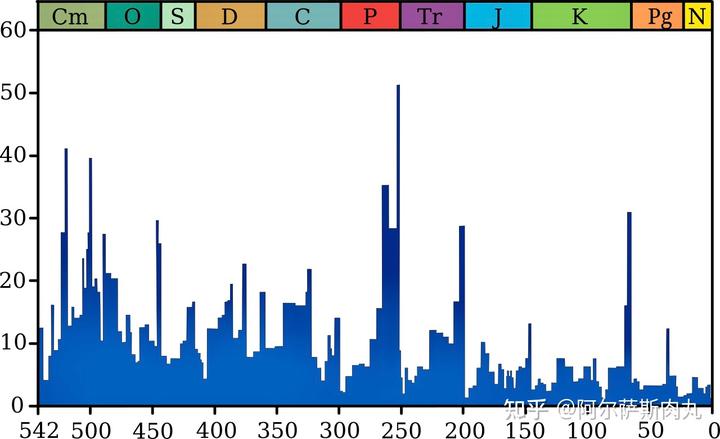
结果自然也是显而易见的,这场异常波动直接推波助澜的影响到了当时白垩纪海洋中顶级捕食者的生态位格局:
从三叠纪开始就制霸海洋的鱼龙目自此跌下神坛、而曾经在侏罗纪叱咤风云的上龙类同样沦为这次事件的受害者,这两个昔日的海洋霸主就这样双双陨落。
而幸存下来的蛇颈龙类最终则和后起之秀沧龙类一起重铸了中生代“海爬帝国”最后的辉煌,它们迅速开始辐射演化在这个千载难逢的间隙扩散开来直到另一场更可怕的灾难将“海爬时代”彻底终结。
要论“辈分”的话,鱼龙目(Ichthyosauria)称得上是比恐龙总目还要更源远流长的类群,目前有记录的化石证据显示最早的鱼龙大致出现在距今约 2.5 亿年前的三叠纪,而此时真正意义上的恐龙总目尚未出现(最早的恐龙要到 2.3 亿年左右才会正式登场)。
但即便是这些生存年代最早、最原始的鱼龙其形态结构也都显示出高度适应海生环境的特征,所以究竟鱼龙“下海”前的陆地祖先是谁、长什么模样目前依旧是古生物学界的一个谜题……
尽管现在有学者提出“鱼龙目可能演化自二叠纪的副爬行类”,但这一假说尚需更多化石证据来支撑因此准确性有待商榷,也因其独特的演化地位它们自成一派「鱼龙型下纲」与「主龙型下纲」和「鳞龙型下纲」并列为“龙形类(Sauria)”中的三大派系之一。
令人唏嘘的是,鱼龙目最终在距今约 9000 万年前的白垩纪森诺曼 - 土伦阶之后销声匿迹,从灭绝时间来看它们依旧比恐龙早了约 2500 万年。
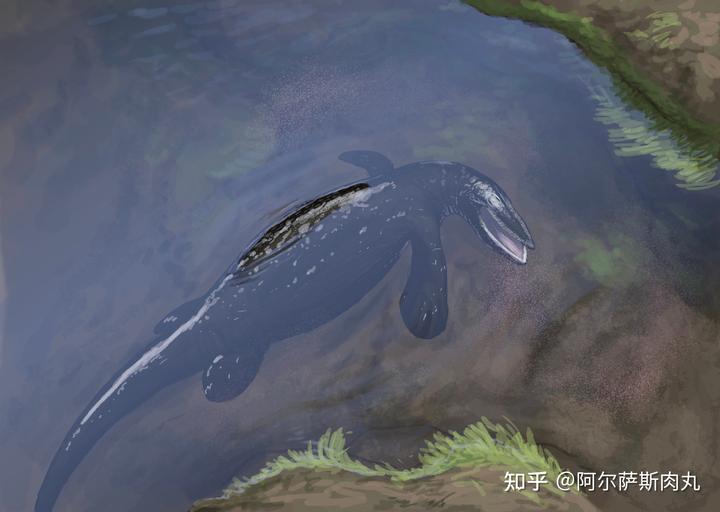
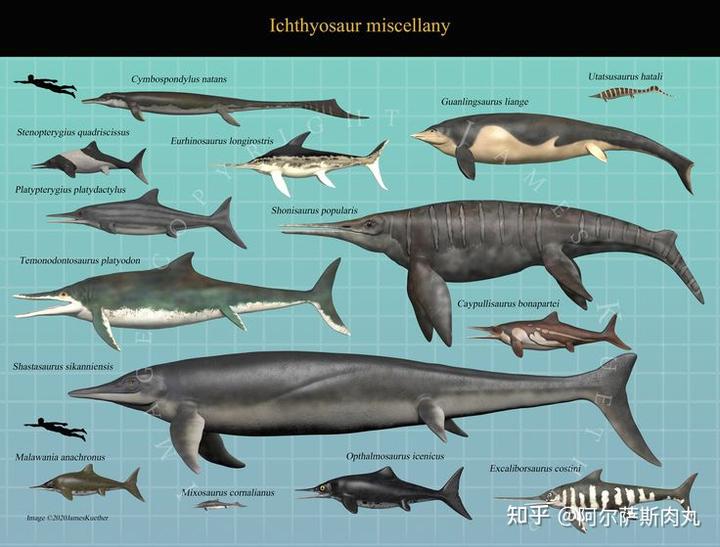
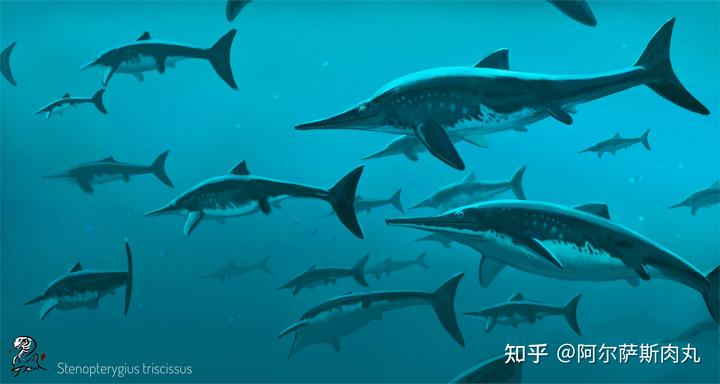
晚三叠纪~早侏罗纪这段时间算是整个鱼龙家族演化的巅峰期,此时的鱼龙目分化出了至少四个科的多个属种,从体长仅有 1 米的小型类群到最大体长超过 10 米的大个头应有尽有,无论是种群多样性和所占据的生态角色来看都完全不输后世的鲸类。
其中的代表成员如:真鼻鱼龙属、鱼龙属、蛇嘴鱼龙属、狭翼鱼龙属、切齿鱼龙属和大眼鱼龙属等类群,它们虽然彼此体型上差异巨大但在外观上都无一例外的拥有纺锤状的流线型“鱼形化”躯体。
这些最衍化、最成功的鱼龙就是被俗称为“中生代海豚”的鲔鱼型鱼龙类。
实际上,鱼龙目的衰败并非是在一夜之间发生的而是经历了一个相对平缓且持续的递进过程,即便是在鱼龙公认的“黄金期”侏罗纪,当时的鱼龙种群虽然依旧繁盛但其多样性已开始减少,海洋顶级捕食者的位置也被大型化的上龙类把持着。
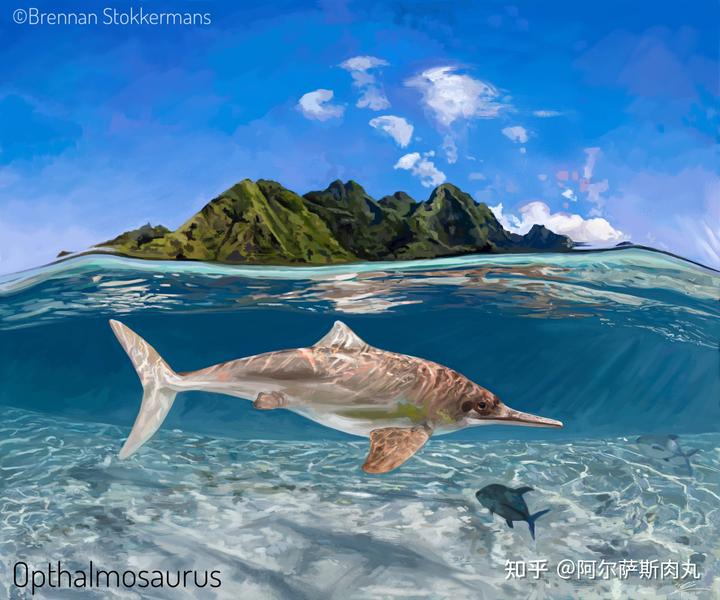
这个时候的代表性鱼龙就是体长 4 米左右的大眼鱼龙(Opthalmosaurus)及其近亲,它们拥有几乎完美的“水滴型”身躯。
大眼鱼龙硕大的眼眶和发达的巩膜环都说明它们能够在光线比较暗的深海中捕猎,鱼雷一般的流线型身材也让它们的游泳效率大大提升,从已发现的化石证据来看,各种头足类动物是大眼鱼龙日常最爱的食物。
当时间来到中生代的最后一个纪元——白垩纪之时,此时鱼龙的多样性依旧在持续下降中,迄今为止发现的白垩纪鱼龙类仅剩下 3 属且都是大眼鱼龙科(Ophthalmosauridae)之下的扁鳍鱼龙亚科(Platypterygiinae)的成员,分别是:
礁灵鱼龙属(Caypullisaurus)
母椎鱼龙属(Maiaspondylus)
扁鳍鱼龙属(Platypterygius)
最近几年的研究还发现在进入白垩纪之后到森土阶灭绝事件发生之前这段时间里,鱼龙的种群比我们此前认为的更多样化。
2012 年的一篇论文显示:至少有 8 个血统的鱼龙成功跨过了侏罗纪~白垩纪边界,而到了白垩纪早期除新发现的泅龙外剩余的其他鱼龙几乎无一例外全都来自大眼鱼龙科,代表类群除上述提到的几个属外还有坚泳鱼龙属(Acamptonectes)和巧泳鱼龙属(Sveltonectes)。
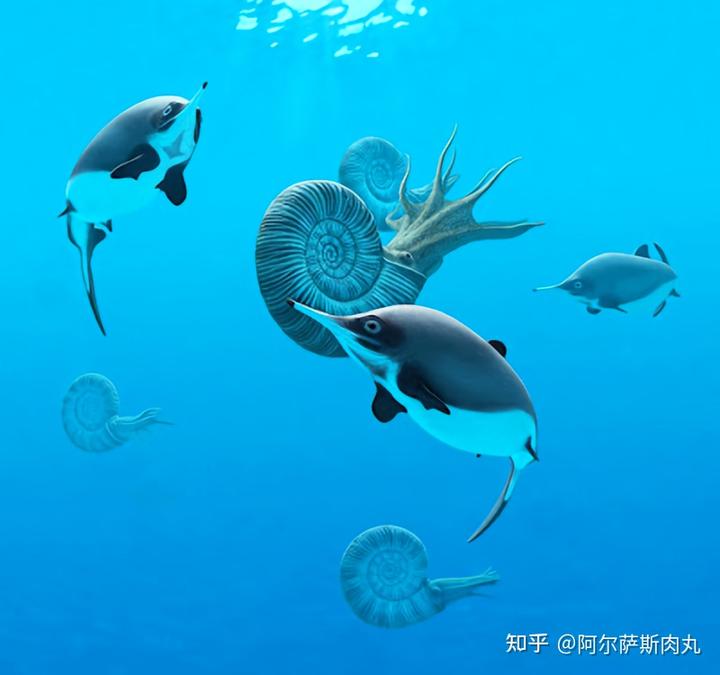
白垩纪鱼龙的衰败过程大致可描述为两个阶段:森诺曼阶早期发生的第一次程度较小的灭绝使得当时三个属的鱼龙种群中的两个都消失了,一直坚挺的扁鳍鱼龙属顽强的存活到早白垩世的阿普第阶才灭绝。
而第二次灭绝事件发生在森土交界时期,也就是规模更大、影响程度更深的海洋缺氧事件,剩余的鱼龙种群在距今 9000-9300 万年前左右彻底绝灭。
由此也可以看出鱼龙在森诺曼 - 土伦阶灭绝事件发生之前其种群衰落的迹象就可见端倪,这个日渐凋敝的种群只不过最终因海洋系统发生的这次剧变加快了其走向灭亡的进程。
此时鱼龙种群的未来仿佛那一轮缓缓坠入海平面的夕阳,被海水所湮没只是时间问题……难道它们真的没有未来可言了吗?
丨“时间的囚徒”
就在所有人都认为整个鱼龙目即将就此陨落之时,一具来自伊拉克库尔德地区的化石却再次刷新了我们对这个物种顽强生命力的认知,它们的出现给处在风雨飘摇中的鱼龙家族带来了一丝新的希望,或许生命的火苗还不会就这样熄灭。
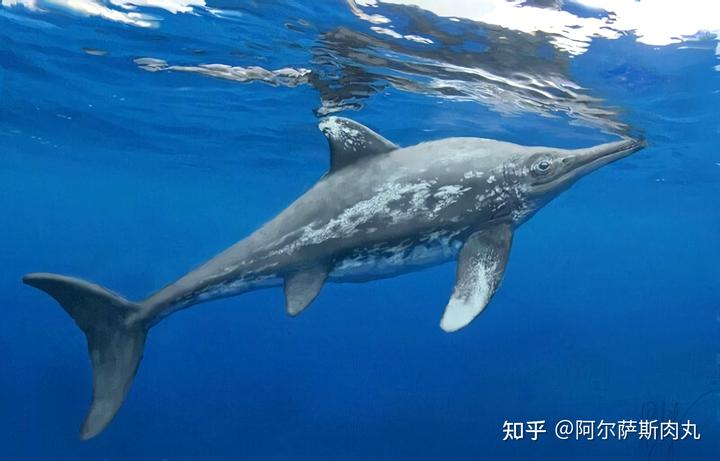
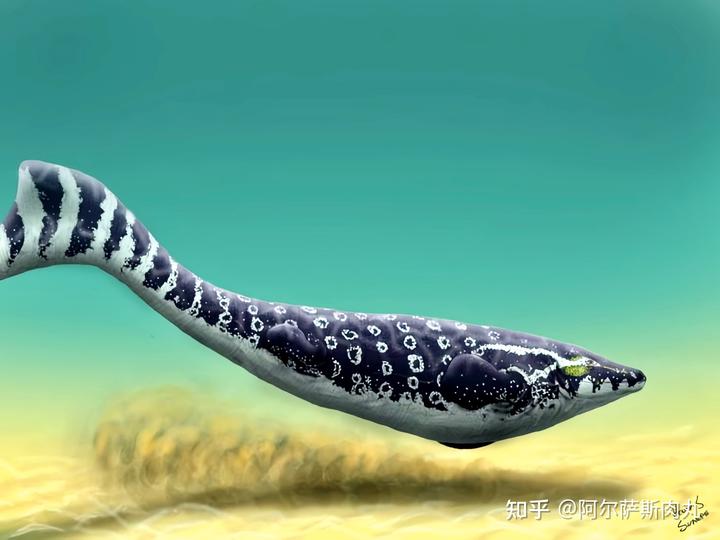
它就是——泅龙(Malawania)!
正模标本出土自早白垩纪豪特里维阶~巴列姆阶的伊拉克北部库尔德斯坦,由瓦伦汀•费雪为主的多名古生物学家团队于 2013 年正式对外描述、命名。
●分类:[鱼龙目 Ichthyosauria- 鱼龙科 Ichthyosauridae- 泅龙属 Malawania,模式种迷失泅龙 M.anachronus]
迷失泅龙之所以引人关注是因为它们的外型特征比起前面提到的那几种白垩纪大眼鱼龙类更加原始,在分类位置上属于鲔鱼龙类中的基底群,同时也是鱼龙科中最后的成员。
谁能想到这个生存在白垩纪早期的末代鱼龙反而与更早之前那些三叠纪晚期~侏罗纪早期的前辈更相似!要知道白垩纪最后的那几种鱼龙均属于大眼鱼龙科,而泅龙则是鱼龙科唯一幸存到白垩纪的幸运儿。
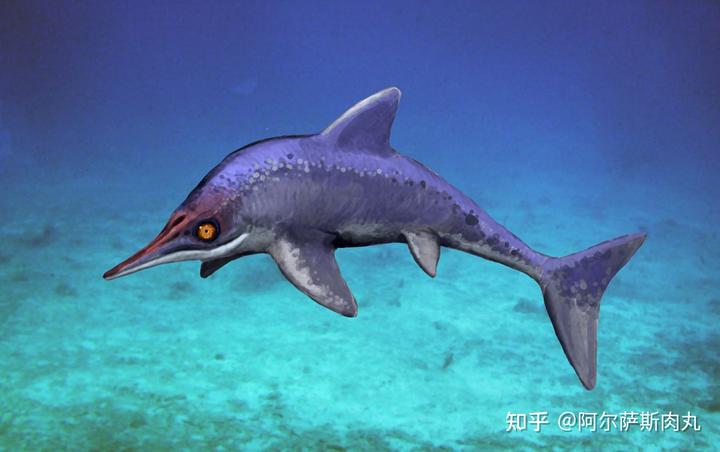
而它的发现和命名过程同样命途多舛。
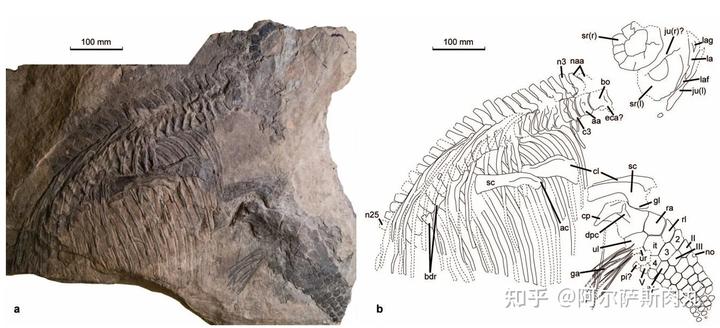
迷失泅龙的正模标本最初由英国石油地质学家道格拉斯•麦可•莫顿达姆辛在 1952 年的伊拉克库尔德斯坦地区发现。
随后的 1959 年,该样本被运回英国捐赠给自然历史博物馆然而直到 2004 年,也没有任何与之相关研究结果发布,仅在 1979 年有化石手稿发布在《古生物学 Palaeontology 》上,但却因无法准确描述该样本所存在的地层年代而遭到退回。
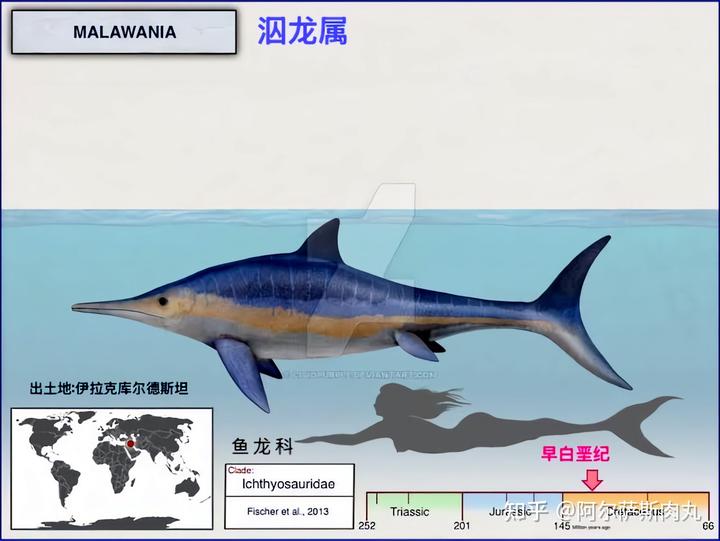
时间来到 2013 年,这具快被遗忘的样本才最终得以被正式发表命名,通过孢粉学分析样本确认化石所属的地质年代为白垩纪早期的豪特里维阶至巴列姆阶之间。
由于迷失泅龙在生理结构上比其他白垩纪鱼龙类更为原始,再加上最终测算出的生存年代让古生物家也颇感意外故而才有了这么一个奇特的名字。
它的属名“Malawan”在当地库尔德语中的意思翻译过来就是“游泳者”,而种名则来源于拉丁语中“anachronus”一词,字面意思就是“迷失在时间中”。
泅龙就像是一个被困在早白垩纪的孤独泳者,它没有同伴也看不到未来,只能像一个从侏罗纪穿越而来的时间囚徒般等待着命运的终点。
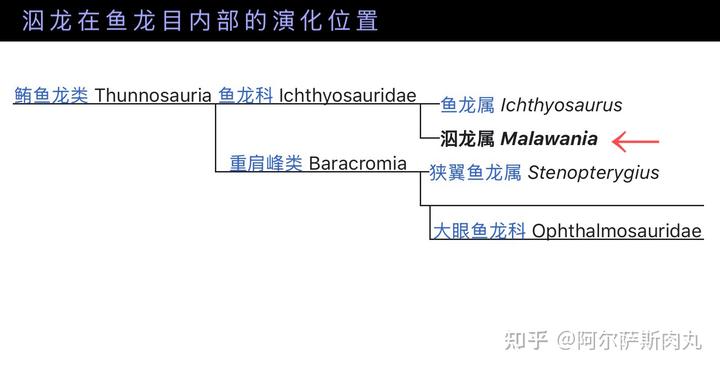
泅龙的每个眼疳骨(也就是眼眶前缘的成对骨头)的前端有一个空心,推测这可能是其泪腺所在的位置;除此之外它们的眼眶较长、向后投射的范围一直延伸到眼眶下方的一半长度、眼眶周围有 13 块骨头支撑形成的发达巩膜环,说明泅龙具有较强的深海潜泳能力。
与大眼鱼龙科的成员不同,泅龙的颈椎骨除第一节的长度是其余颈椎的两倍外,剩余的颈椎长度均相同,并且它们的肋骨的前部分与椎骨的边缘也更圆润,神经棘还形成一个独特的梯形结构,这些都是泅龙所独有的鉴定特征。
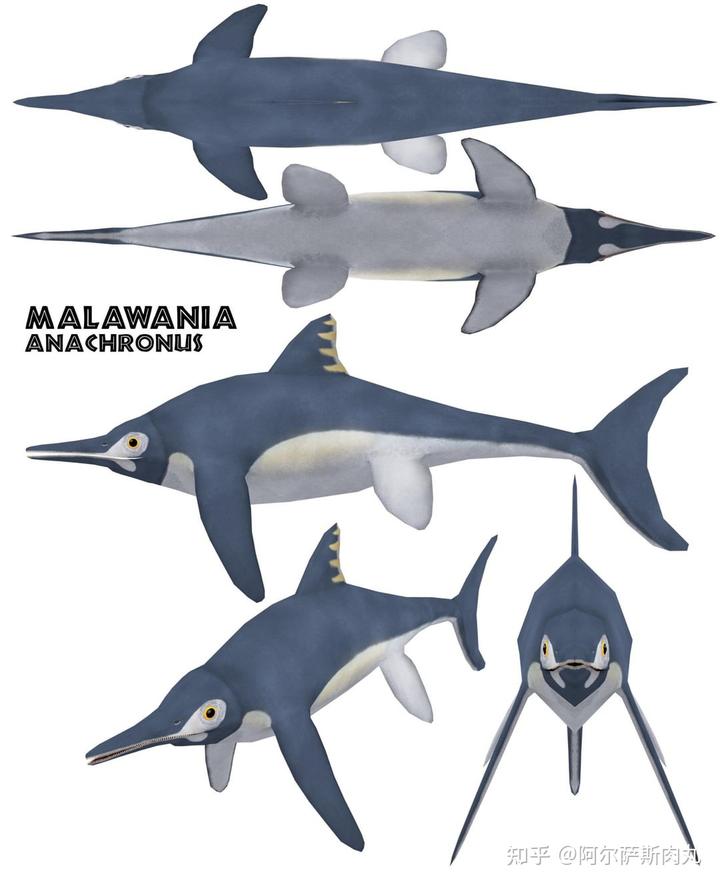
泅龙当然无法凭一己之力扭转整个鱼龙家族江河日落的命运,但它的出现再次印证“镶嵌演化”现象确实是一个不常见但在多个物种身上都有出现过的演化小插曲。
当最后一头泅龙环顾四周再也找不到一个同伴之时,这个从三叠纪横跨到白垩纪的古老血脉至此也划上了休止符,它们如同一个孤独的“穿越者”最终迷失在白垩纪蔚蓝的深渊中。
丨“宿命的轮回”
演化就是这么神奇且充满了戏剧性,作为有鳞目的沧龙它们的“下海”演化之路与鱼龙竟然发生了交集,尽管这两者素未谋面。
其实如果你仔细观察就会发现最早的鱼龙外表看上去并不像海豚和鱼类,反而更像是长着鳍状肢的蜥蜴而且身材也普遍较为修长,这种从“面条型”的鳗鱼型身躯向“鱼雷型”的流线型身躯转变的过程在沧龙、鲸类身上也能看到。
三叠纪早期~中期的很多基干鱼龙类的化石广泛发现于加拿大、中国、日本和挪威的斯匹兹卑尔根岛等地区,代表性的类群就包括:巢湖龙、短尾鱼龙,歌津鱼龙,它们几乎无一例外都没有背鳍也没有后来更进步的鲔鱼型鱼龙那样完美的鱼形身材。
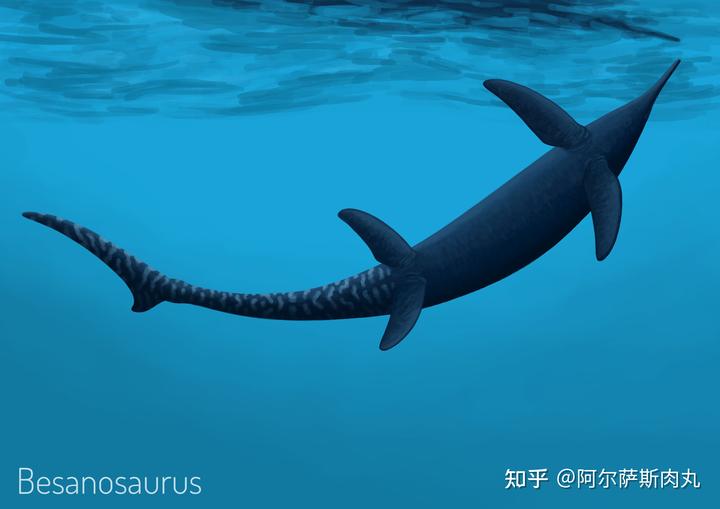
无独有偶,作为继任者的沧龙也完美复刻了先辈鱼龙曾走过的路。只是相比于鱼龙扑朔迷离的起源之谜,我们对沧龙类的演化过程掌握得更清晰明了。
它们一路从类似崖蜥这样迫于生计选择时不时“下海”求生躲避捕食者攻击的小蜥蜴,到最终蜕变成晚白垩纪波涛中不可一世的巨无霸,沧龙确实算是边缘物种成功逆袭的典范。
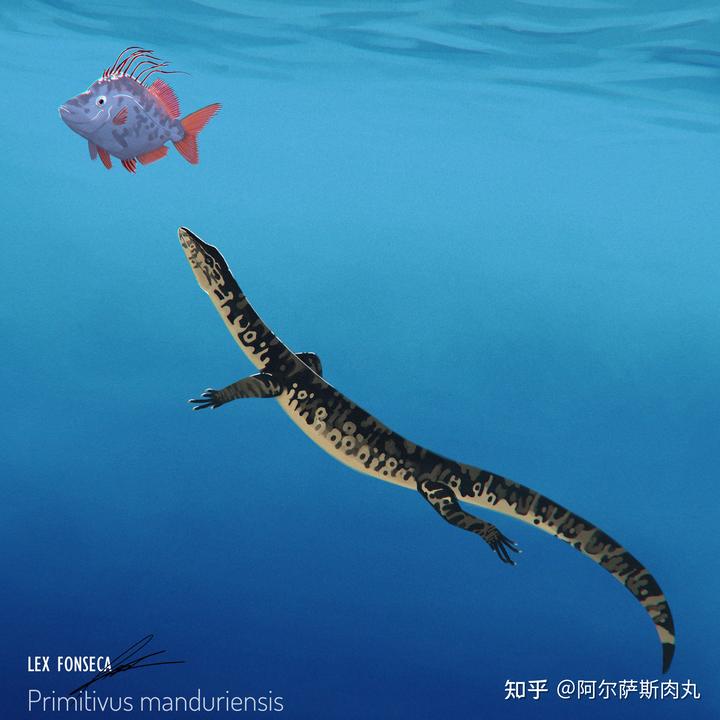
沧龙超科在中生代白垩纪最后的这 3000 万年里,迅速开枝散叶以惊人地辐射演化速度扩张到了几乎当时全球的所有海域,甚至还有部分成员进军淡水地带抢占鳄类的生态位。
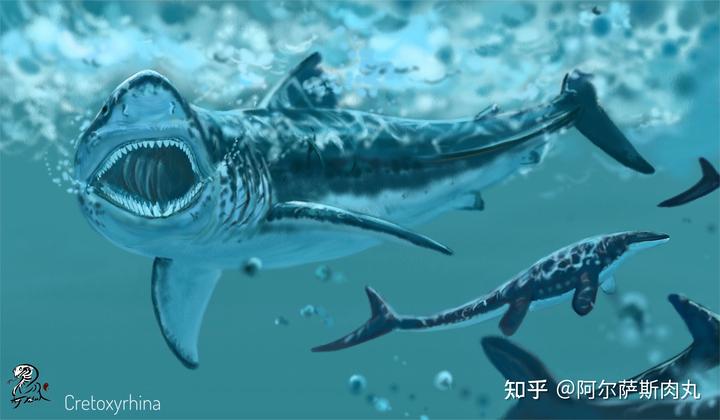
鱼龙和上龙灭绝之后空缺的海洋生态位迅速被各种形态大小不一的沧龙所取代,即便是同样幸存下来的蛇颈龙类也无法与沧龙竞争。这其中以沧龙属、海王龙属和倾齿龙属为代表的三个知名度最高、体型最大的成员也是很多人印象中最经典的沧龙形象。
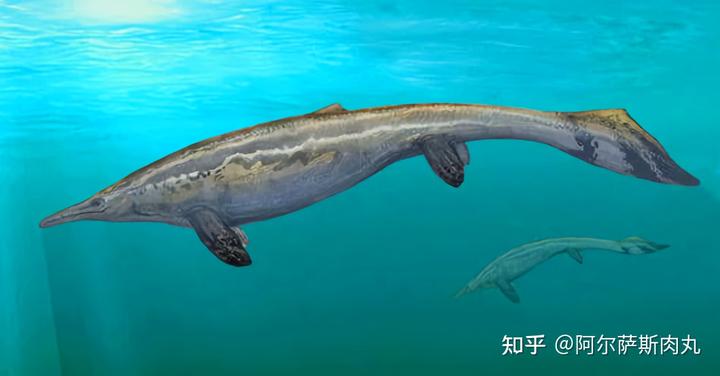
不过如果要说哪一种沧龙最接近鱼龙的外观形态,那就不得不提到一种生存在北美洲的独特沧龙成员——浮龙。
丨“莞莞类卿”
鱼龙身上的一系列高度特化的衍征既帮助它们成功统治中生代海洋但很可能也是导致其灭绝的原因:
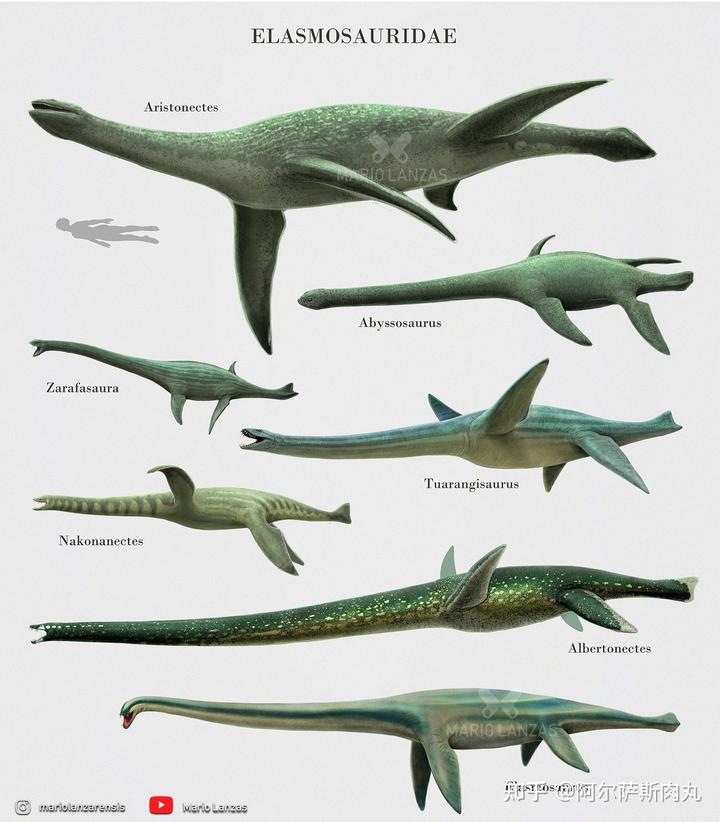
它们可能无法猎食那些新出现、速度更高、日渐繁盛起来的真骨附类鱼类,而沧龙和蛇颈龙虽然没有那么完美的“鱼形化”身材但却凭借着独特的快速突击方式捕食各种新兴的真骨鱼类。
有不少人想当然的认为三叠纪的各种巨型鱼龙占据着类比今天大型须鲸的滤食性捕食者生态位,然而实际上这个生态位在鱼龙种群中并不存在。
早期的有一些鱼龙具有相对扁平的凸状牙齿非常适合粉碎贝类等甲壳类生物,因此它们中的部分种群扮演着浅海底栖捕食者这个角色。
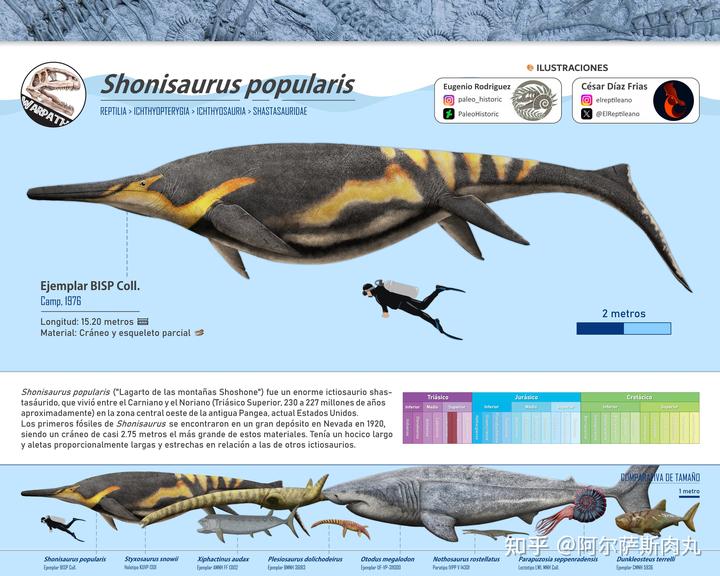
诸如秀尼鱼龙这样的庞然巨兽更接近巨食性捕食者,从鱼类、头足类到其他中小型海洋脊椎动物它们几乎来者不拒。
来自 2013 年一项研究发现:这些大型鱼龙的舌基部舌骨骨化程度很低,根本无法支持它们像须鲸那样通过吸食的方式进食,巨型鱼龙更可能是通过不断在游动的过程中张开嘴巴向前收集鱼群、头足类食物,而它们的牙齿结构也有能力处理更大型的猎物。
我们再说回沧龙。
在自然选择的压力下沧龙快速的适应了海洋环境,越是后期的进阶型沧龙在外观形态上就越明显的褪去了蜥蜴的外表,向着鱼龙的模样靠拢。
顺便说一句,外表与蛇类高度趋同的其实是伸龙科而非沧龙科,它们的外观形态和蛇类一样出现了明显的弱化四肢的趋势。
言归正传。
浮龙(Plotosaurus)属名的字面意思翻译过来就是“游泳的蜥蜴”,这是一种生存在距今 7200-6600 万年前的晚白垩纪马斯特里赫特阶的进阶型沧龙,模式种标本于 1942 年正式命名描述,化石来自美国加利福利亚的费雷斯诺县。
正模标本由 54 块背椎、颈椎和尾椎组成,标本最初送到加州大学伯克利分校保存并进行更深入的研究。
随后的 1938~1940 年间,加州理工学院的古生物学家又在科林加北部的莫雷诺地层发现了另外三个骨骼碎片,其中最完整的一具包括了一个颅骨、39 片前椎骨、一个肩带和前肢和尾椎残骸。
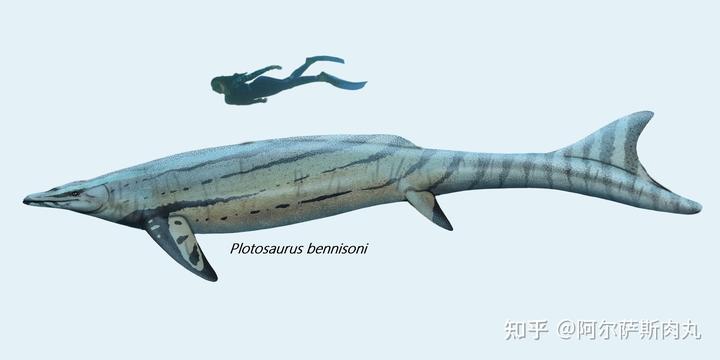
●分类:〔有鳞目 Squamata- 沧龙总科 Mosasauroidea- 沧龙科 Mosasauridae- 沧龙亚科 Mosasaurinae- 浮龙属 Plotosaurus,目前有两个有效种本尼森浮龙 P.bennisoni(模式种)、 特氏浮龙 P.tuckeri〕
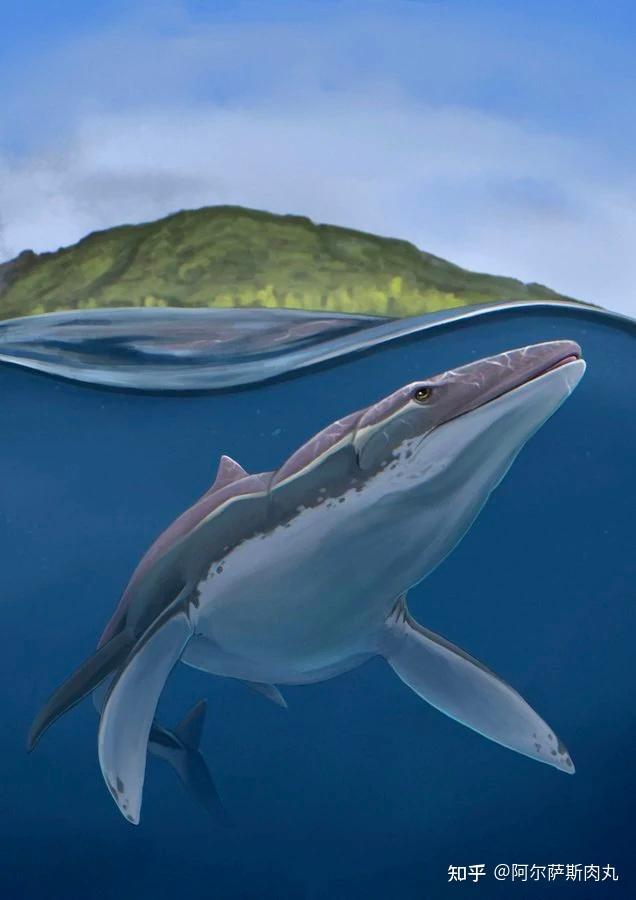
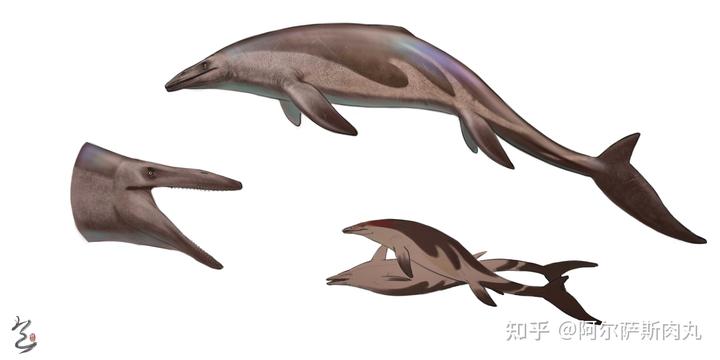
浮龙是当时白垩纪晚期北美地区最成功的一类沧龙,跟许多其他典型的沧龙成员相比,浮龙的诸多独有特征让它们显得独树一帜。
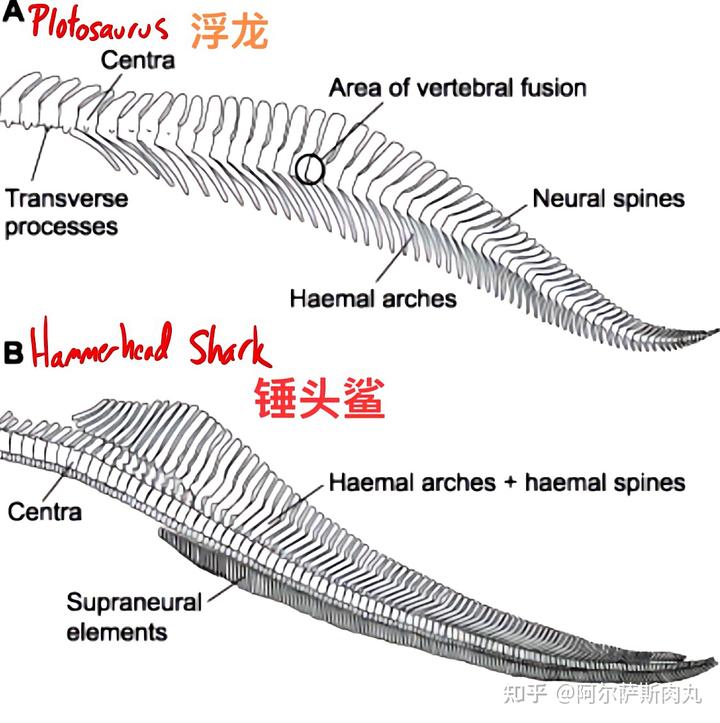
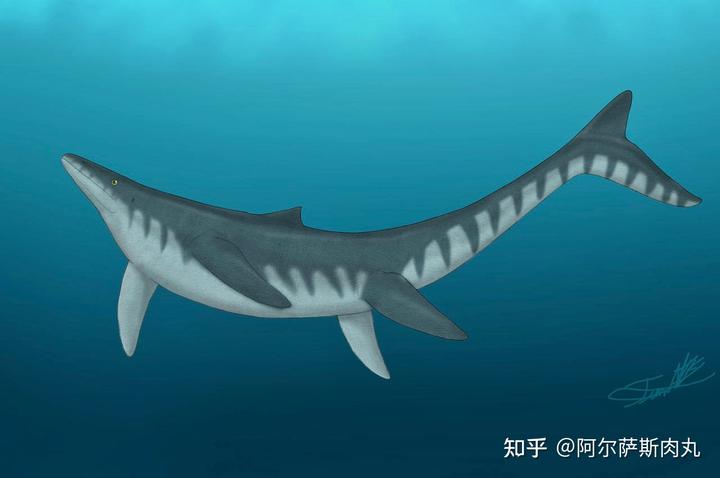
比如它们的鳍状肢更为狭窄、尾鳍的尾叶更为巨大且有逐渐演变为更为对称的上下双尾叶结构的趋势、身体更加流线型并且可能有初级发育的背鳍、更加“鱼形化”的身躯让它们摆脱了那种鳗鱼式的左右扭动泳姿,因此推测浮龙的游泳速度可能比其他沧龙更快。
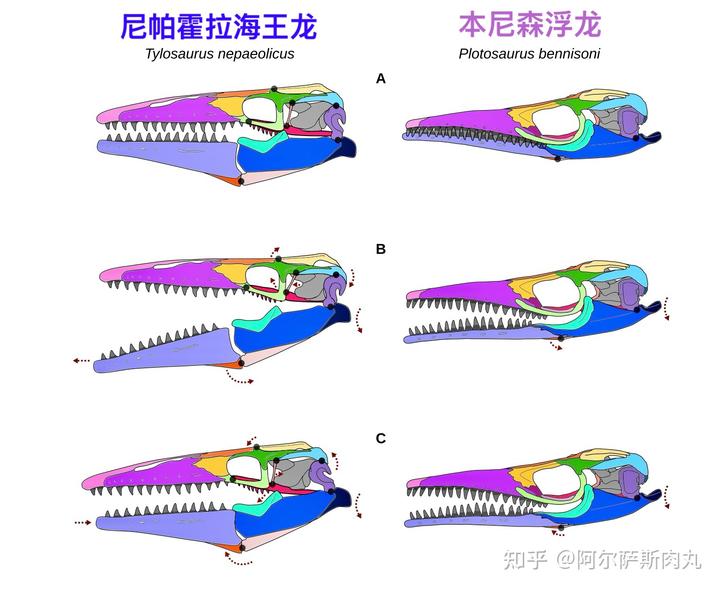
不仅如此,浮龙的眼眶也变得相当大显示出它们拥有相当不错的视力,而它们的牙齿也演变为更适应体表光滑、行动敏捷的真骨鱼类的翼状齿,在食性上也转变为更专性以鱼类为食而非其他大型脊椎动物。
从食性上的特化程度来看,它们可以说与鱼龙当初专攻头足类的演化路线如出一辙!
根据亲缘分支分类法研究结果发现,浮龙可能是所有沧龙科中最衍化的成员,但两个不同种的浮龙在生理结构和运动能力上也存在显著差异。
模式种本尼森浮龙(P.bennisoni)得名于发现者阿兰.本尼森(Allan Bennison),最大体长估测约有 9 米,同时它也是在加州发现的首种沧龙类化石。
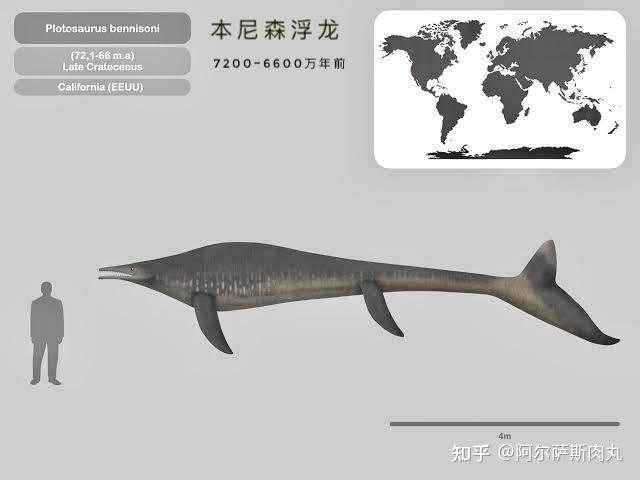
另一个有效种特氏浮龙(P.tuckeri)则是在 1937 年由由威廉.特克纳(William M.Tucker)发现命名,相比模式种它知名度没有那么高但体型却更硕大,成年后的最大个体估测能达到惊人的 12-13 米!
但特氏浮龙的“鱼形化”程度反而没有本尼森浮龙那么深,它们的游泳速度也相对更慢。
来自加州理工学院的对比研究发现:与模式种相比特氏浮龙的椎骨数量更多且它们的颅骨形态也没有那么衍化、额骨没有向后延伸、翼状齿数量较少、松果孔也更小。
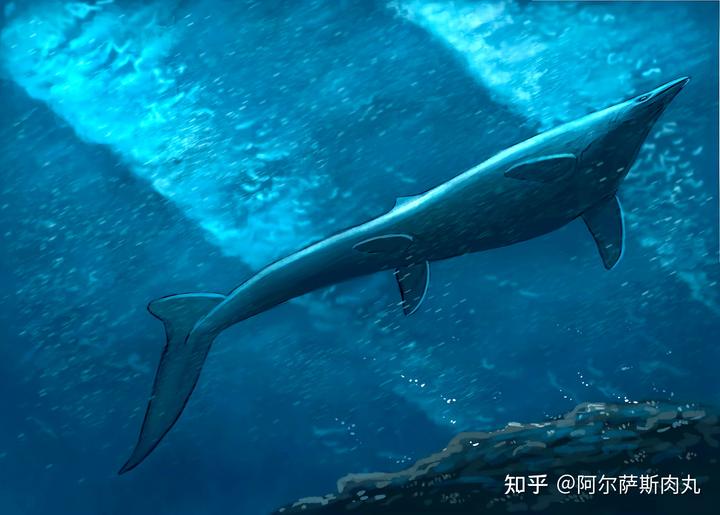
实际上尾鳍和背鳍的强化在鱼龙的演化路径上早就提前给沧龙预演了一遍。
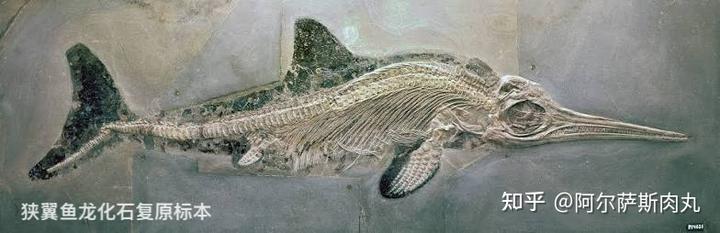
在不少早期的原始鱼龙复原形象中几乎都省略了背鳍和尾鳍的存在,本身这些结构作为软组织就相对更难保存为化石但我们还是可以根据其骨骼结构特征进行推测还原。
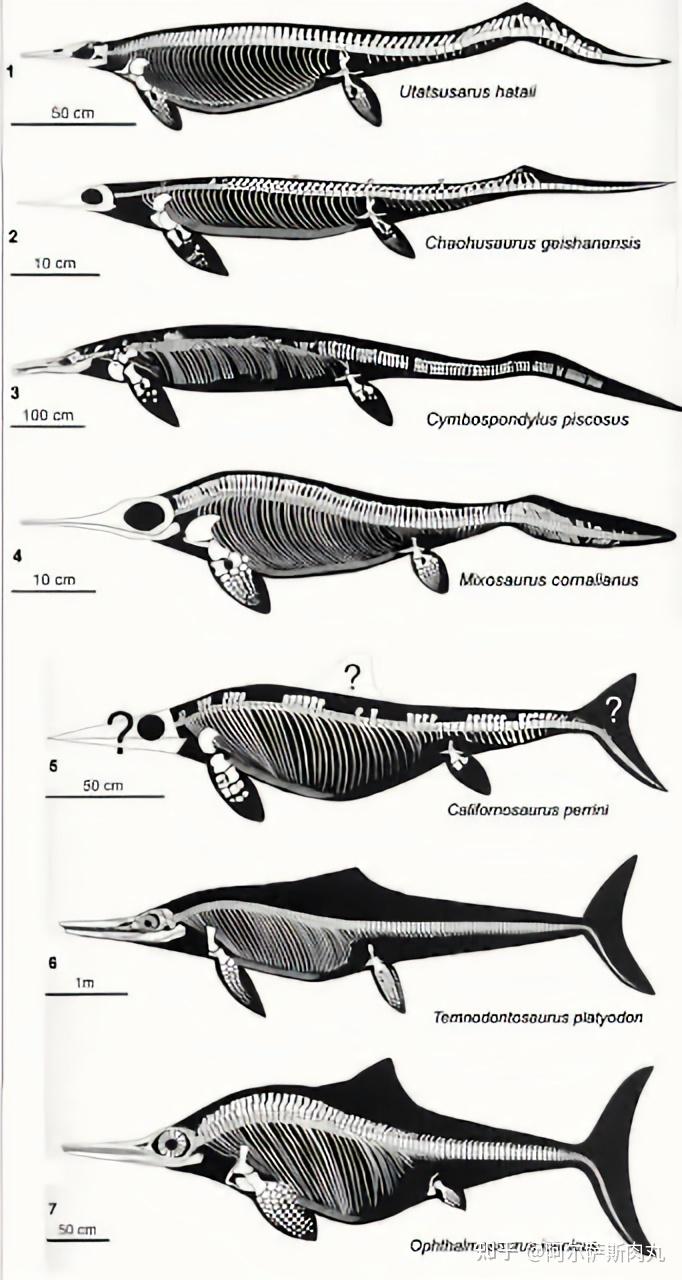
无论是沧龙、鱼龙还是现代的鲸类,这些海生羊膜类的背鳍和尾鳍都没有坚硬的骨骼作为支撑,本质上是由特化的肌肉和皮肤组织形成而来的软组织。
作为典型的海生爬行类,沧龙和鱼龙的尾椎骨在后期均走上了相同的特化方向,即:将脊椎骨末端向下弯曲形成一个下尾叶,而上尾叶则没有骨骼支撑完全由隆起的肌肉组织构成,最终上下尾叶合在一起形成一个类似弯月的垂直桨状尾鳍作为推进器。
●分类:〔有鳞目 Squamata- 沧龙总科 Mosasauroidea- 沧龙科 Mosasauridae- 沧龙亚科 Mosasaurinae- 巨鳍龙属 Megapterygius,模式种和歌山巨鳍龙 M.wakayamaensis〕
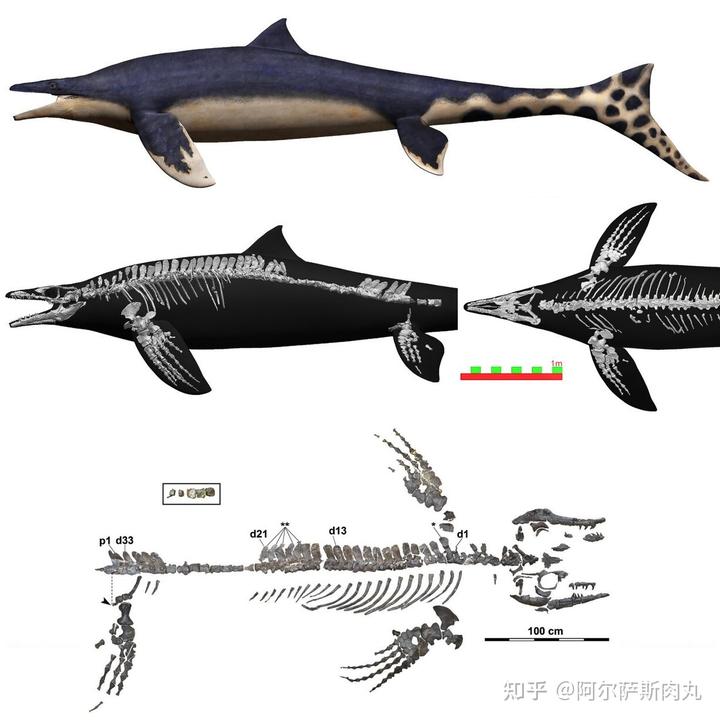
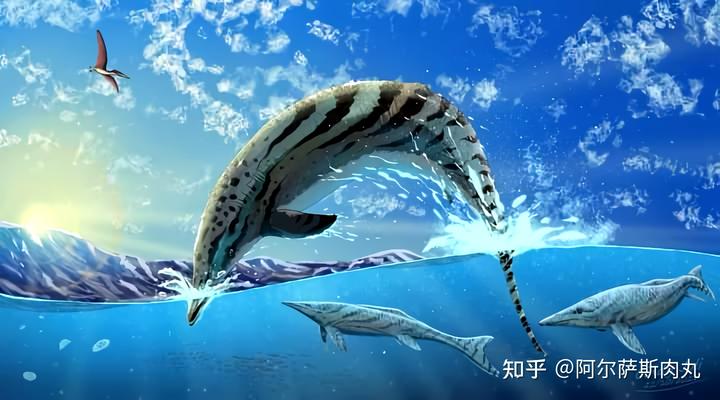
几乎同一时期,在北半球今天日本海域还活跃着另一种同样高度“鱼龙化”的晚期沧龙,并且它们还演化出更为夸张的鳍状肢和背鳍。
巨鳍龙(Megapterygius)的属名直译过来就是“大翅膀”,正模标本来自日本晚白垩世的鸟屋城组(Toyajo Formation)长谷川泥砂岩段,目前该属唯一有效种就是模式种和歌山巨鳍龙(M.wakayamaensis)。
正模标本(编号:WMNH-Ge-114024002)保存度较高,由一个头骨、一段完整的颈椎骨和背脊组成,共计包括了 40 多块脊椎、肋骨、两个前鳍状肢和左后鳍状肢碎片。
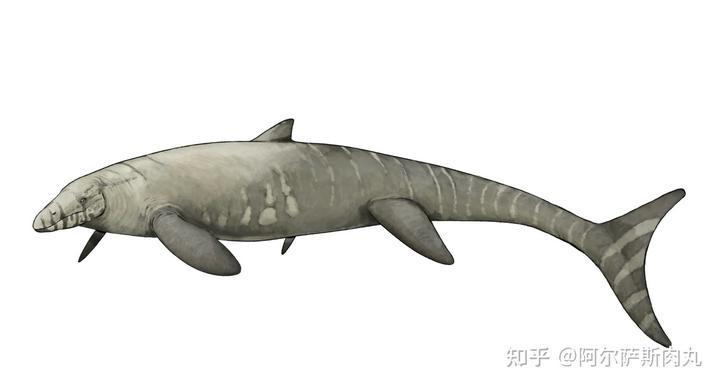
2023 年,古生物家小西(Konishi) 和团队根据这些化石遗骸正式将其描述命名。
属名“Megapterygius”分别由古希腊语里的"megas(巨大)"+"pterygion(翅膀)"两个词根组合而来,用来形容它们异常硕大类似翅膀的两对鳍状肢;种加名“wakayamaensis”则为了纪念化石发现地和歌山县。
由于巨鳍龙是少有的公布有和名汉字称呼的古生物,因此中文名无需翻译直接将日本语中的「和歌山滄竜」转写过来即可。(*Soryu 一词在日本语中特指代「沧竜」)
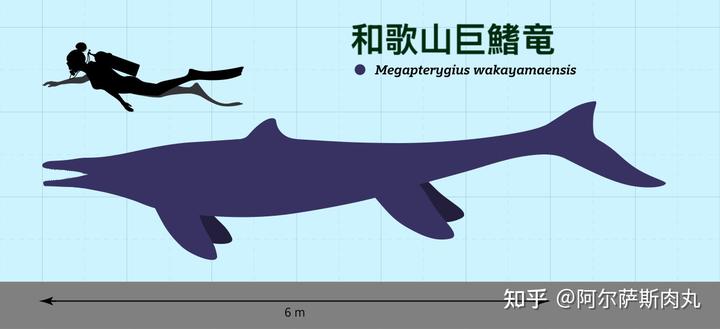
作为一类中等体型大小的沧龙科成员,巨鳍龙的头骨长度约有 0.8 米、身长最大在 6 米左右,虽然个头并没有特别显眼但它们的四肢比例却尤其夸张。
大部分沧龙都是前鳍比后鳍更长,而巨鳍龙则不同它们的后鳍甚至还略微比前鳍更长且四肢的长度甚至超过了头骨的长度,这一独有衍征在任何其他沧龙身上都见不到反而倒是有点像侏罗纪那些靠后肢驱动游泳的海鳄类。
值得一提的是,巨鳍龙应该也是为数不多有确凿证据显示有背鳍发育的进阶型沧龙。
分布在它们后背椎的神经棘中至少有五个向前突出,这一特征在现存的海豚科身上尤为明显,其突出的对应的部位正是背鳍的基部。
由此推测巨鳍龙的背鳍可以保证它们在水中快速游动时提供必要的稳定性,这显示出后期沧龙的流体力学结构不断加强越来越向鱼龙的外观靠拢。
除此之外,研究人员还发现巨鳍龙的肱骨呈鞍状结构且内侧更厚,这表明它们的前鳍内收、外展和前伸、后缩的幅度范围很大,从而能更灵活快速的操控鳍状肢的角度。
沧龙和鱼龙一样并没有演化出现代齿鲸的回声定位能力,因此视觉对于这些海生蜥形纲而言就显得尤为重要。
巨鳍龙的眼窝周围的头骨面积略宽显示出它们具有良好的双目视觉,这也让它们成为继磷酸盐龙之后第二个明确拥有双目视觉能力的沧龙,发达的双目视觉能够让它们更精准的锁定捕食目标从而提高捕食的成功率,这也是很多顶级捕食者都有的共同特征。
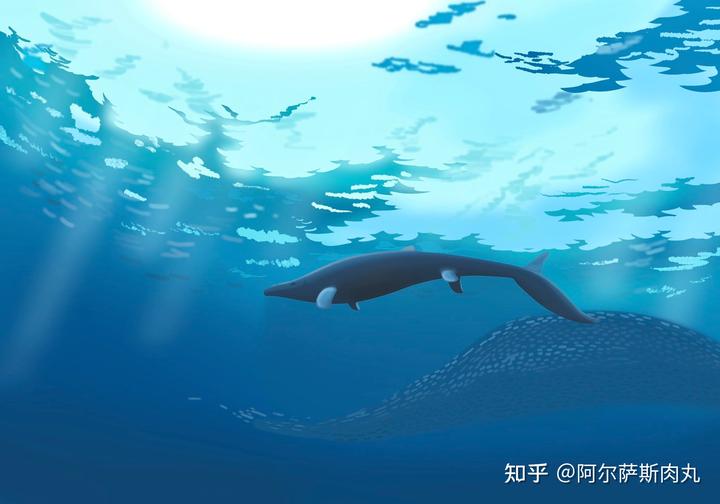
尽管由于保存状况不佳导致巨鳍龙正模标本的尾巴结构形态并不明确,但考虑到它们和浮龙一样趋同的“鱼龙形”外观推测,巨鳍龙很可能也长着一个比较对称的新月形尾鳍。
发达对称的尾鳍有助于它们游泳时快速推进和急速转弯,结合其头骨形态和独特的鳍状肢小西教授认为:巨鳍龙不仅捕食各种快速游动的鱼群,还能制伏一些体型更大的脊椎动物。
■结 语
鱼龙目作为一个横跨三叠纪、侏罗纪、白垩纪的“三朝元老”书写了整个“中生代海爬帝国”中最壮美的篇章,从横空出世到巅峰盛世再到落寞退场,研究它们的兴衰历程能更直观的帮助我们认识到物种演化的规律。
并且这个物种一直在刷新我们对“海爬”的刻板印象。
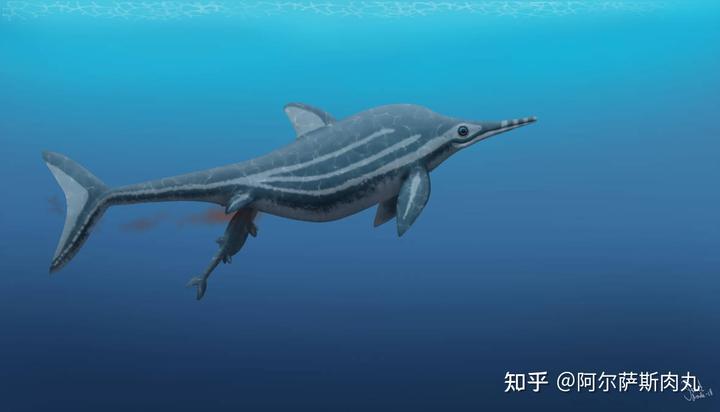
2017 年,在德国一处距今约 1.82 亿年前的碳酸盐地层中出土了一具狭翼鱼龙(Stenopterygius)的椎骨,而这些椎骨碎片的不寻常之处就是保留下许多富含胶原蛋白纤维、胆固醇、血小板和红细胞、白细胞沉积的痕迹。
由于这些组织结构并不会因为活体的死亡而石化,因此就成为识别生物分子的原始有机组织的鉴定特征。
有趣的是,狭翼鱼龙骨骼中发现的这些红细胞大小只有现代海洋哺乳类的 1/4~1/5,考虑到侏罗纪托阿尔阶(Toarcian)这一时期的海水含氧量更低,因此这很可能也是狭翼鱼龙对缺氧环境下呼吸的一种适应性演化。
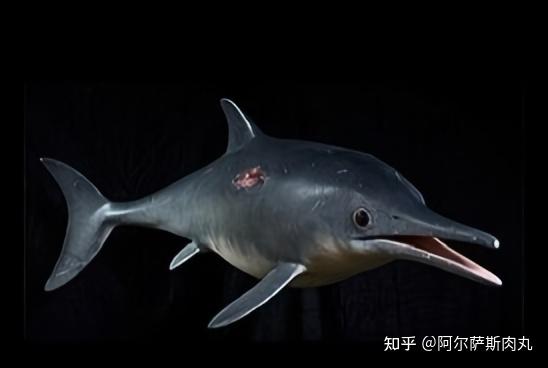
更让人意想不到的是在 2018 年,古生物学家又在另一具狭翼鱼龙的化石遗骸中发现了皮下脂肪存在的证据,由此证明有些鱼龙和现代的鲸类一样拥有发达的脂肪组织从而能够在温度更低的海域生存,也进一步验证了它们是高代谢率、恒温的海生脊椎动物。
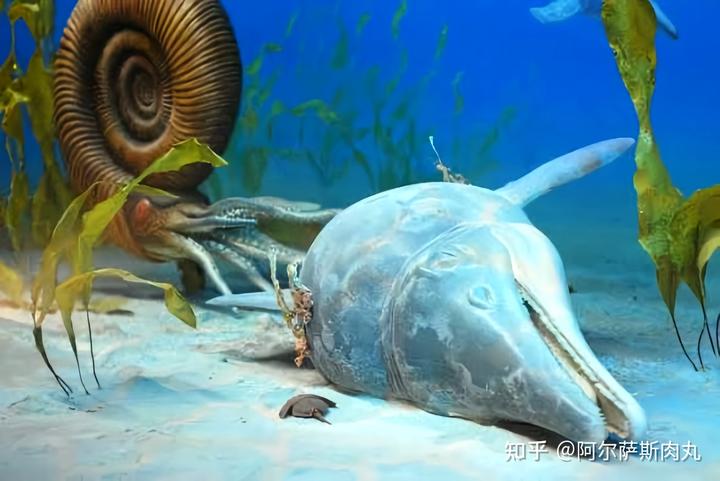
鱼龙也好、沧龙也罢,这两个看似完全不相交的物种却因为面临相同的自然选择压力走上了相同的演化轨迹。无所谓谁取代谁或者哪一个更“进步”,毕竟浩瀚的海洋永远不缺挑战者,没有一个物种会永远立于不败之地。[THE END]
原文出处:知乎日报 (本文由聚合程序自动采集,版权归原作者所有)